24.3 Fituefnaskipti
24.3 Fituefnaskipti
Námsmarkmið
Að loknum þessum kafla átt þú að geta:
- Útskýrt hvernig vinna má orku úr fitu
- Útskýrt tilgang og ferli ketónamyndunar
- Lýst ketónaleysingunni, þar á meðal oxun ketónkorna
- Útskýrt tilgang og ferli fitumyndunar
Fita líkamans, einkum þríglýseríð, kemur annaðhvort úr fæðu eða er mynduð í vefjum, einkum lifur og fituvef, úr forverum á borð við kolvetni (mynd 24.11). Fituefnaskipti ná bæði til niðurbrots fitusýra sem stuðlar að ATP-myndun og til myndunar nýrra lípíða úr smærri einingum. Þau tengjast kolvetnaefnaskiptum því kolefni úr glúkósa getur farið í asetýl-CoA og þaðan í fitusýrur og önnur lípíð.
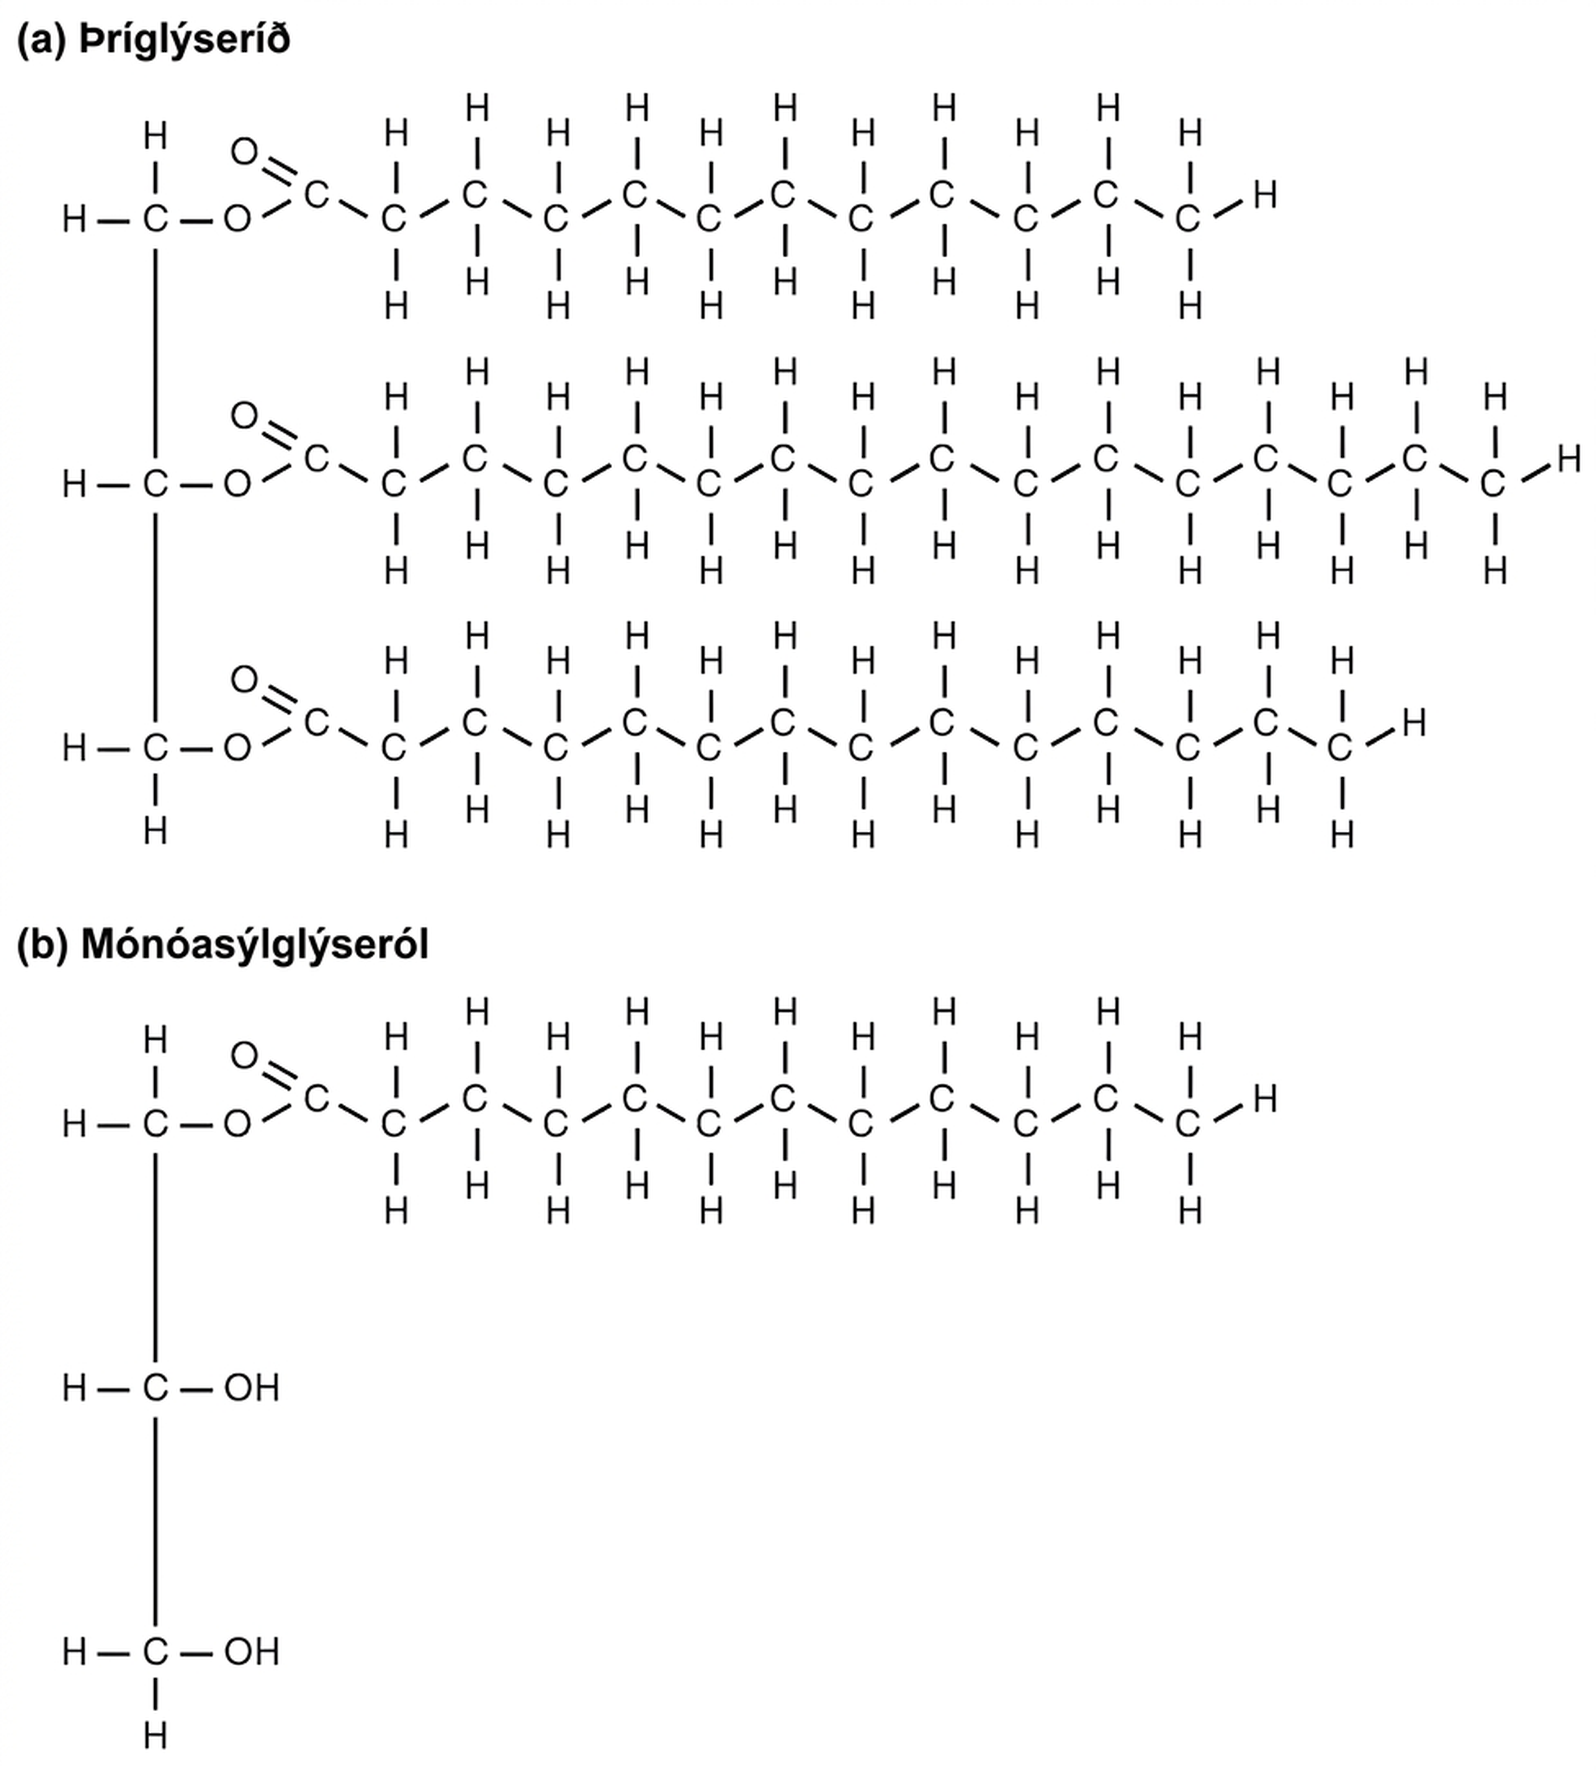
Melting og frásog lípíða fara á undan efnaskiptum þeirra í vefjum. Í smáþörmum eru þríglýseríð vatnsrofin einkum í tvær frjálsar fitusýrur og 2-mónóasýlglýseról (sjá mynd 24.11b). Briskirtilslípasi, með hjálp kólípasa, hvatar vatnsrofið. Gallsölt dreifa fitudropum og auðvelda myndun blandaðra fitukirna en vatnsrjúfa ekki þríglýseríð. Þegar fita og prótín berast í skeifugörn og ásgörn seyta I-frumur slímhúðarinnar kólestókíníni (CCK). CCK örvar seytingu brisensíma, dregur gallblöðruna saman og stuðlar að slökun þrengivöðva lifrar- og brisrásarbiðu svo gall og brissafi berist í skeifugörn. CCK-boð tengjast einnig seddutilfinningu, meðal annars fyrir milligöngu skreyjutaugar og miðtaugakerfis.
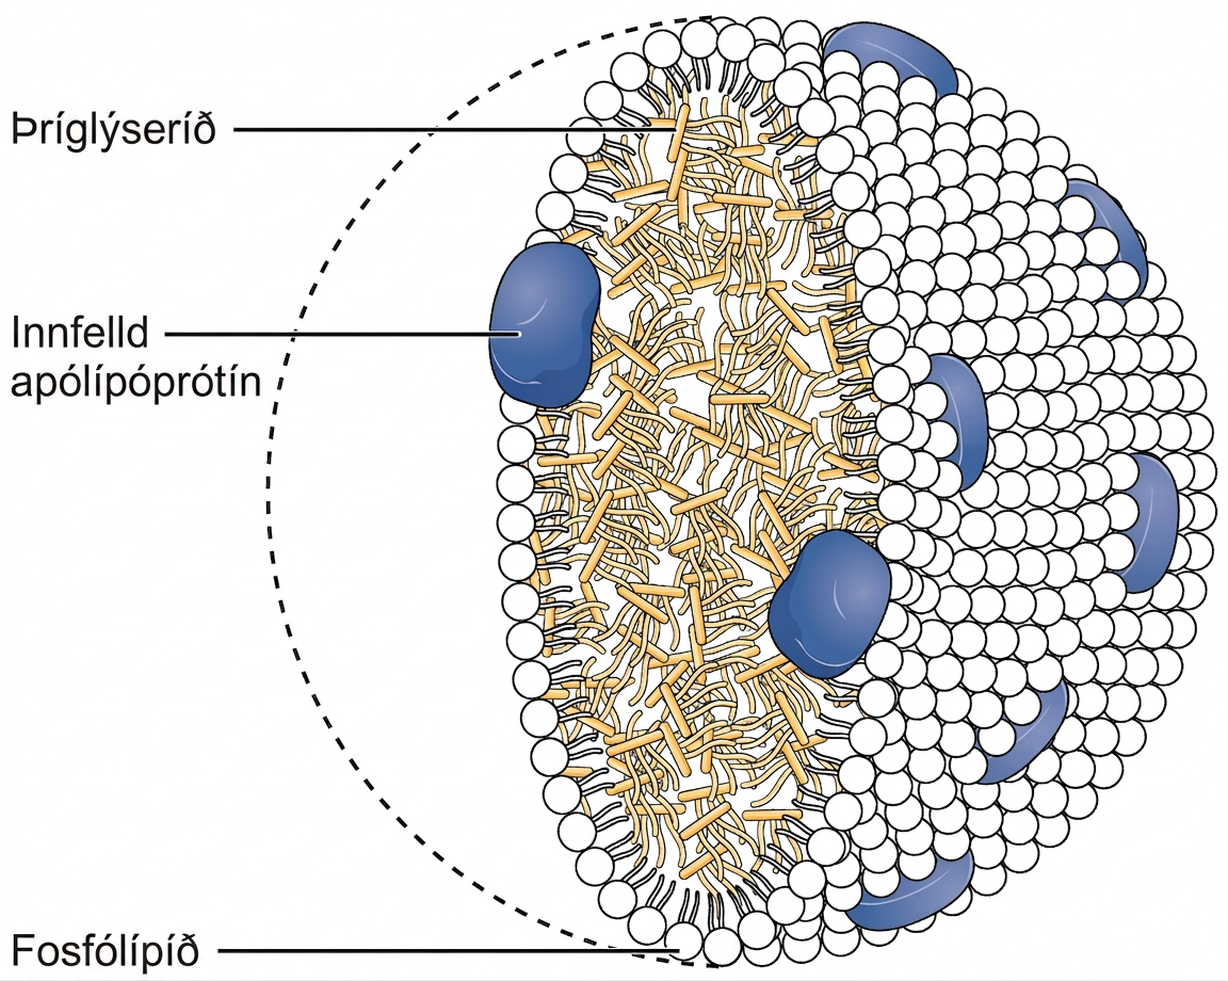
Langar fitusýrur og mónóasýlglýseról berast úr fitukirnum inn í iðraþekjufrumur og eru þar endurmynduð í þríglýseríð. Þríglýseríð og kólesterýlestrar eru síðan pökkuð með fosfólípíðum, óesteruðu kólesteróli og apólípóprótíni B-48 í lípóprótínagnir sem kallast iðrakirni (mynd 24.12). Iðrakirni eru því ekki einfaldar fosfólípíðblöðrur. Þau fara úr frumunum með útfrumun, inn í iðramjólkuræðar þarmatotanna og síðan með sogæðum og brjóstrás í blóð. Lípóprótínlípasi í háræðum, einkum í fituvef og vöðvum, vatnsrýfur þríglýseríð iðrakirnanna og losar fitusýrur til upptöku í vefjum; leifar iðrakirnanna eru teknar upp í lifur. Stuttar og miðlungslangar fitusýrur geta hins vegar borist beint með lifrarportblóði án þess að vera fyrst pakkaðar í iðrakirni.
Fiturof
Til að nýta orku úr forðafitu eru þríglýseríð í fitudropum fyrst vatnsrofin í frjálsar fitusýrur og glýseról. Ferlið nefnist fiturof og er hvatað af lípösum á yfirborði fitudropanna. Fitusýrurnar berast meðal annars bundnar við albúmín til vefja, eru virkjaðar og fara í beta-oxun sem myndar asetýl-CoA, NADH og FADH2. Asetýl-CoA fer í sítrónusýruhringinn en afoxunarígildin styðja oxunarfosfórun. Glýseról berst að miklu leyti til lifrar, þar sem það er fosfórað í glýseról-3-fosfat og síðan umbreytt í díhýdroxýasetónfosfat (DHAP) sem tengist sykurrofi eða glúkósanýmyndun; það fer því ekki beint inn í sykurrof. Algeng langkeðjuð fitusýra á borð við palmítat hefur 16 kolefnisatóm. Fita gefur um 9 kílókaloríur á gramm en kolvetni og prótín um 4 og er því þéttur langtímaorkuforði.
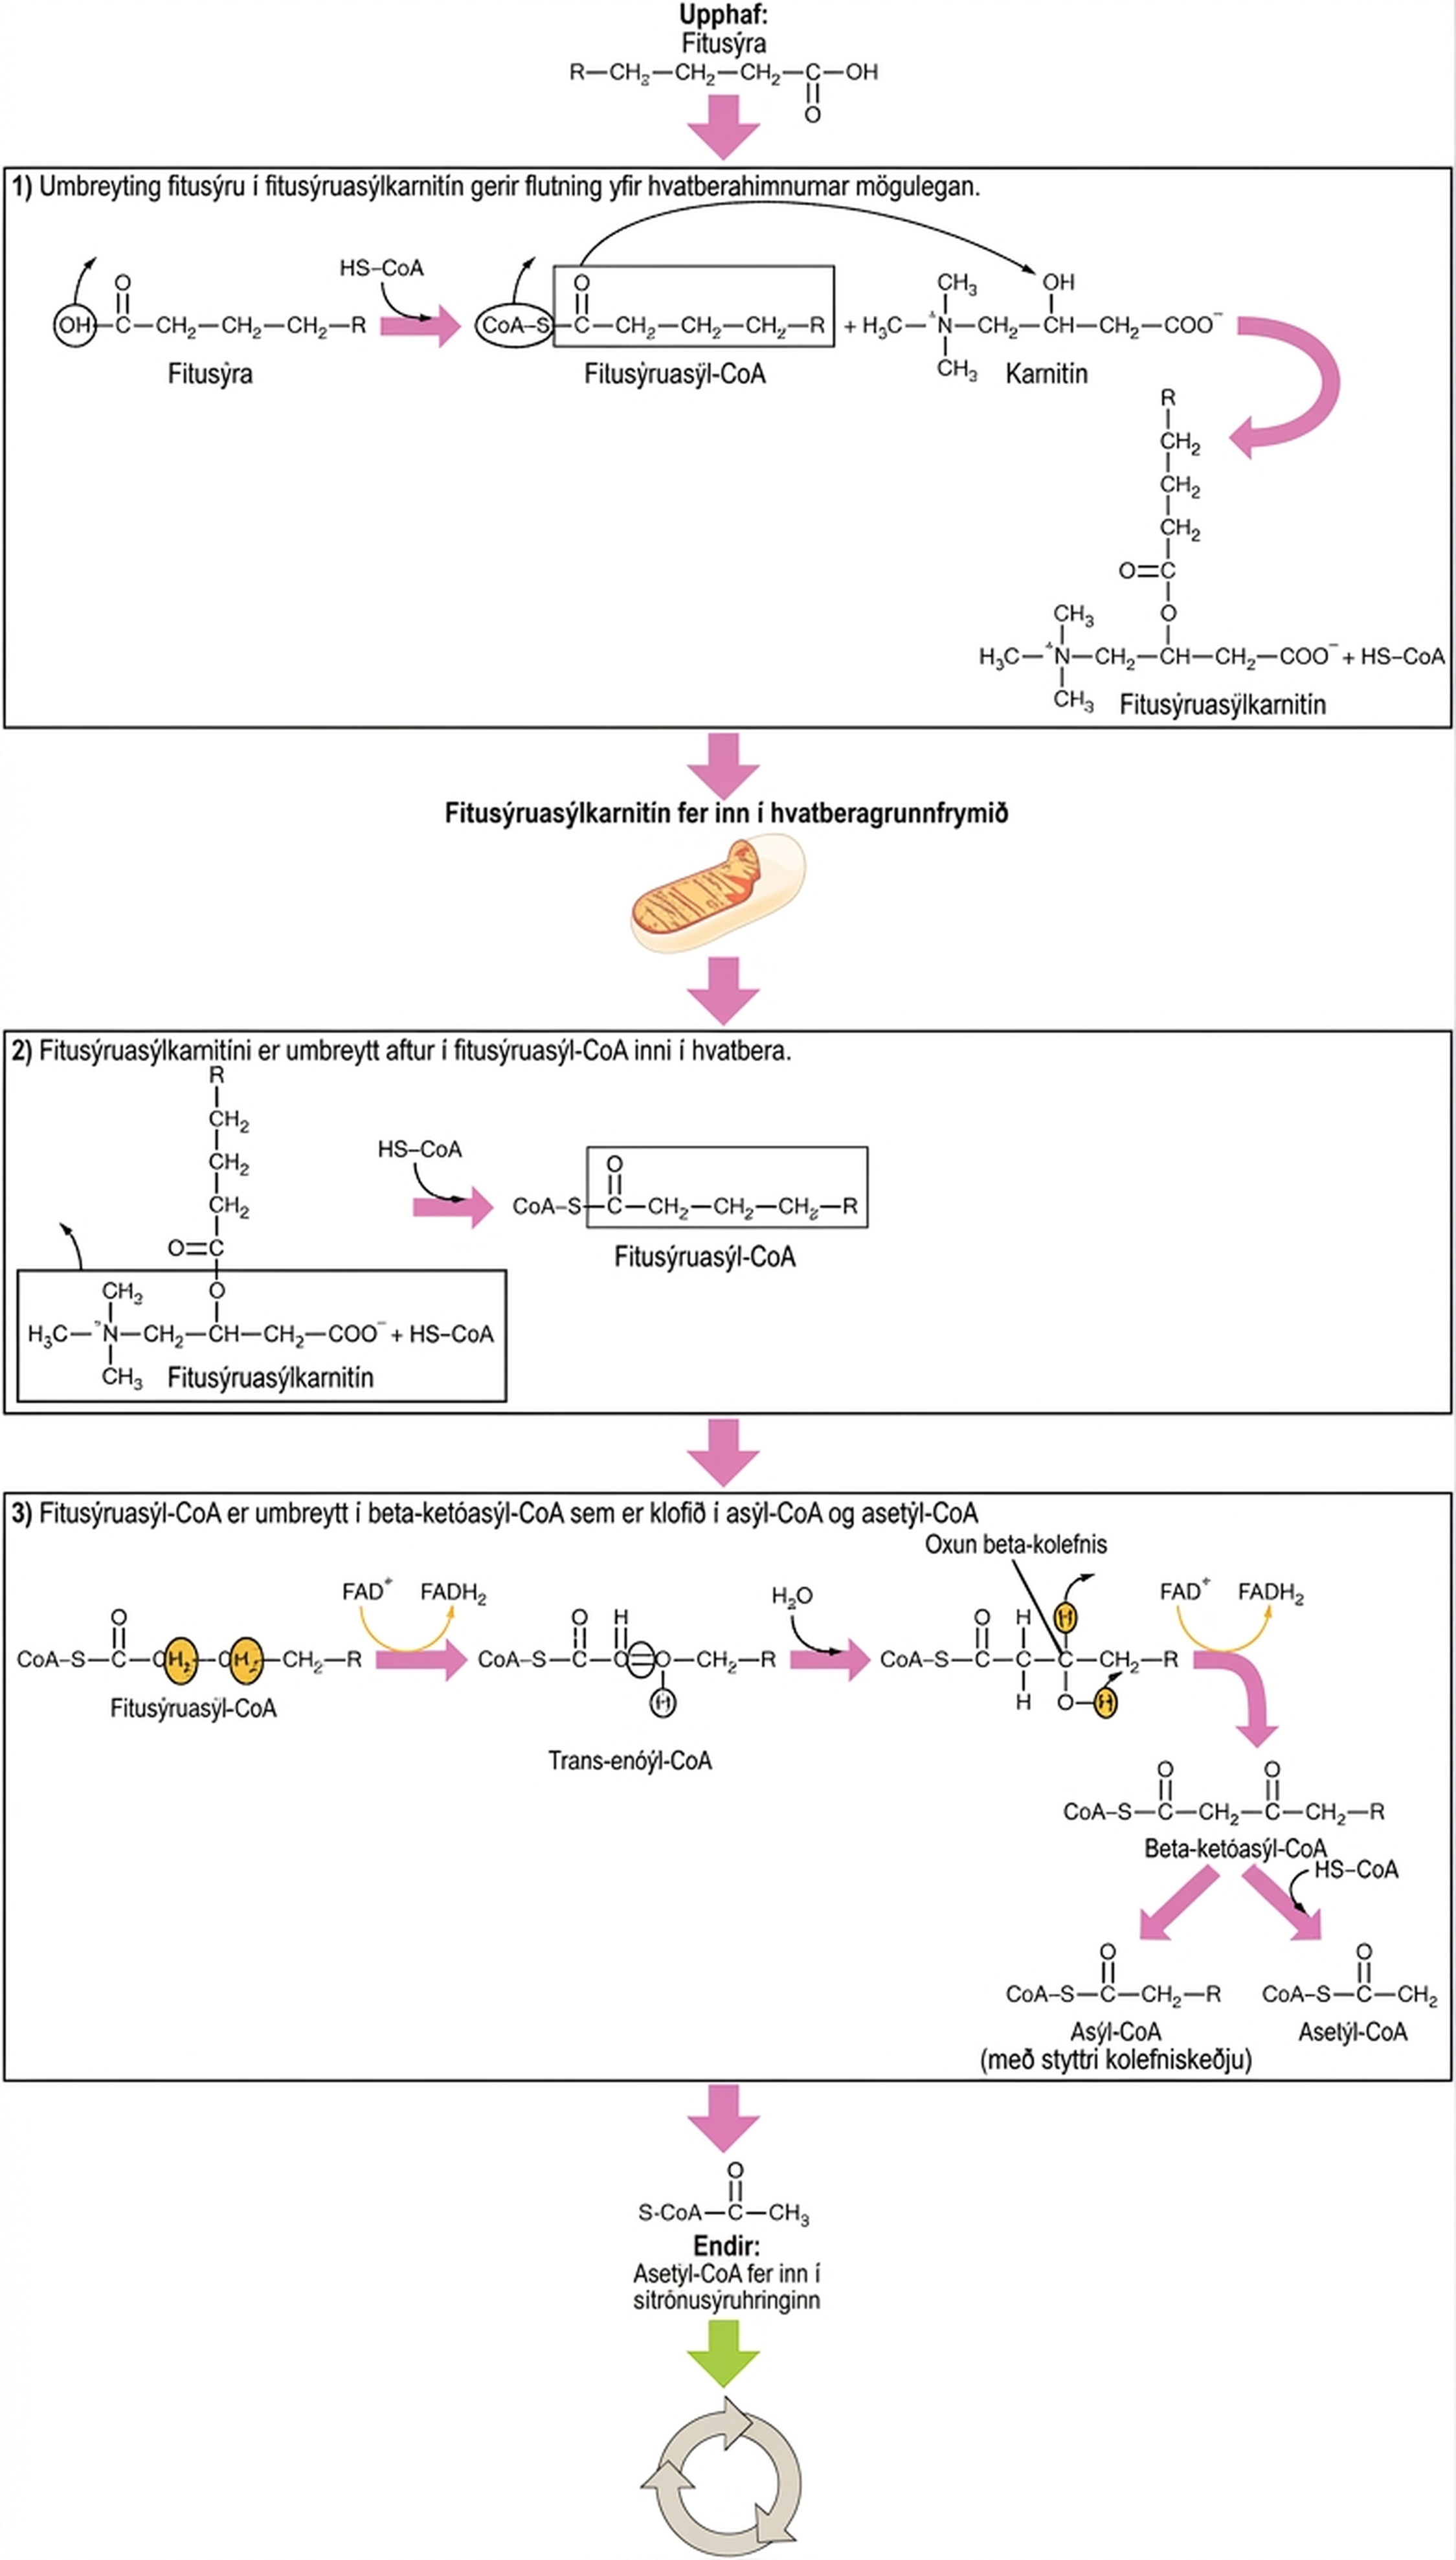
Fitusýruoxun, eða beta-oxun, hefst með virkjun fitusýru í fitusýruasýl-CoA á umfrymismegin við ytri hvatberahimnu. Flutningur langra asýlhópa yfir innri hvatberahimnuna krefst karnitínferjunnar: karnitínpalmítóýltransferasi I flytur asýlhópinn af fitusýruasýl-CoA á karnitín, karnitín-asýlkarnitín-flutningsprótein flytur asýlkarnitín inn í grunnfrymið og karnitínpalmítóýltransferasi II endurmyndar þar fitusýruasýl-CoA. Stuttar og miðlungslangar fitusýrur eru síður háðar þessari ferju. Í hverri umferð beta-oxunar styttist asýl-CoA um tvö kolefnisatóm og myndast asetýl-CoA, NADH og FADH2 (mynd 24.13). Asetýl-CoA fer í sítrónusýruhringinn en NADH og FADH2 leggja rafeindir til oxunarfosfórunar.
Ketónamyndun
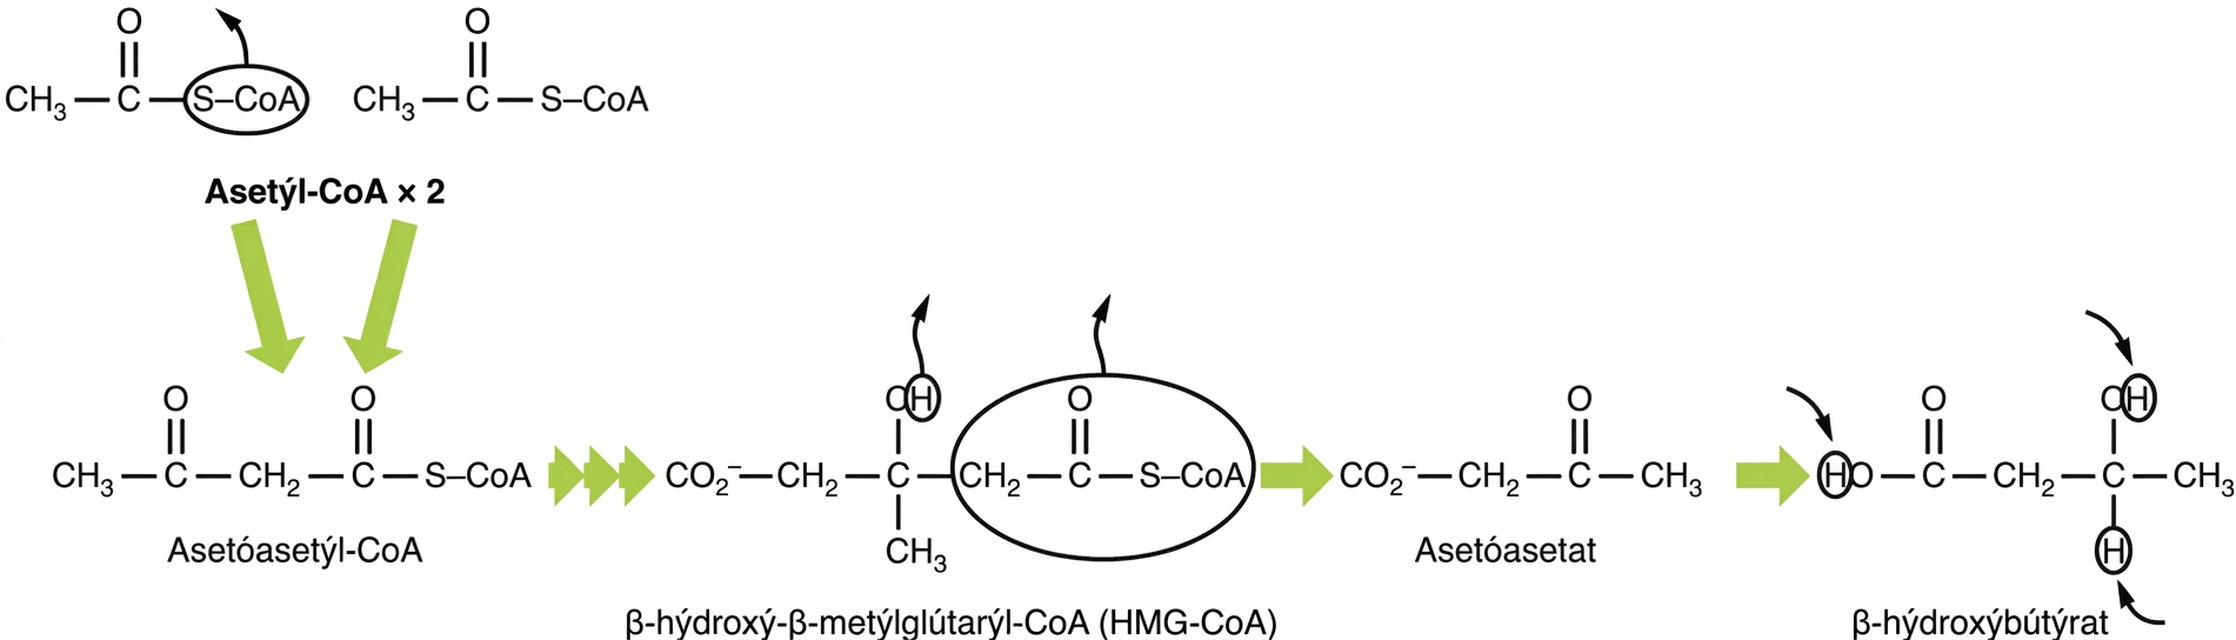
Ketónamyndun fer fram í hvatberum lifrarfrumna þegar fitusýruoxun er mikil, insúlínboð eru lítil og framboð oxalóasetats til sítrónusýruhringsins takmarkast, til dæmis við langvarandi föstu eða alvarlegan insúlínskort. Asetýl-CoA safnast þá upp og fer í myndun þriggja ketónkorna (ketóefna): asetóasetats, beta-hýdroxýbútýrats og asetons. Asetóasetat og beta-hýdroxýbútýrat berast með blóði og eru eldsneyti fyrir ýmsa vefi þegar framboð glúkósa er takmarkað. Lifrin myndar ketónkornin en getur ekki sjálf oxað þau vegna þess að hana skortir SCOT-ensímið. Stýrð ketónamyndun við föstu er lífeðlisfræðileg, en stjórnlaus myndun við alvarlegan insúlínskort, einkum í sykursýki af gerð 1, getur leitt til ketónblóðsýringar. Ferlið stafar ekki einfaldlega af því að sítrónusýruhringurinn sé „ofhlaðinn“; framboð oxalóasetats og myndunarhraði asetýl-CoA skipta máli fyrir afdrif asetýl-CoA.
Í ketónamyndun þéttast asetýl-CoA-sameindir og mynda 3-hýdroxý-3-metýlglútarýl-CoA (HMG-CoA) fyrir tilstilli HMG-CoA-syntasa í hvatberum. HMG-CoA-lýasi klýfur sameindina síðan í asetóasetat og asetýl-CoA. Asetóasetat getur afoxast í beta-hýdroxýbútýrat, sem er oft helsta ketónkornið í blóði við mikla ketónamyndun, eða afkarboxýlerast í aseton (mynd 24.14). HMG-CoA myndast einnig í umfrymi sem milliefni í kólesterólmyndun, en sú efnaskiptaleið er aðskilin frá ketónamyndun hvatbera.
Ketónaleysing (oxun ketónkorna)
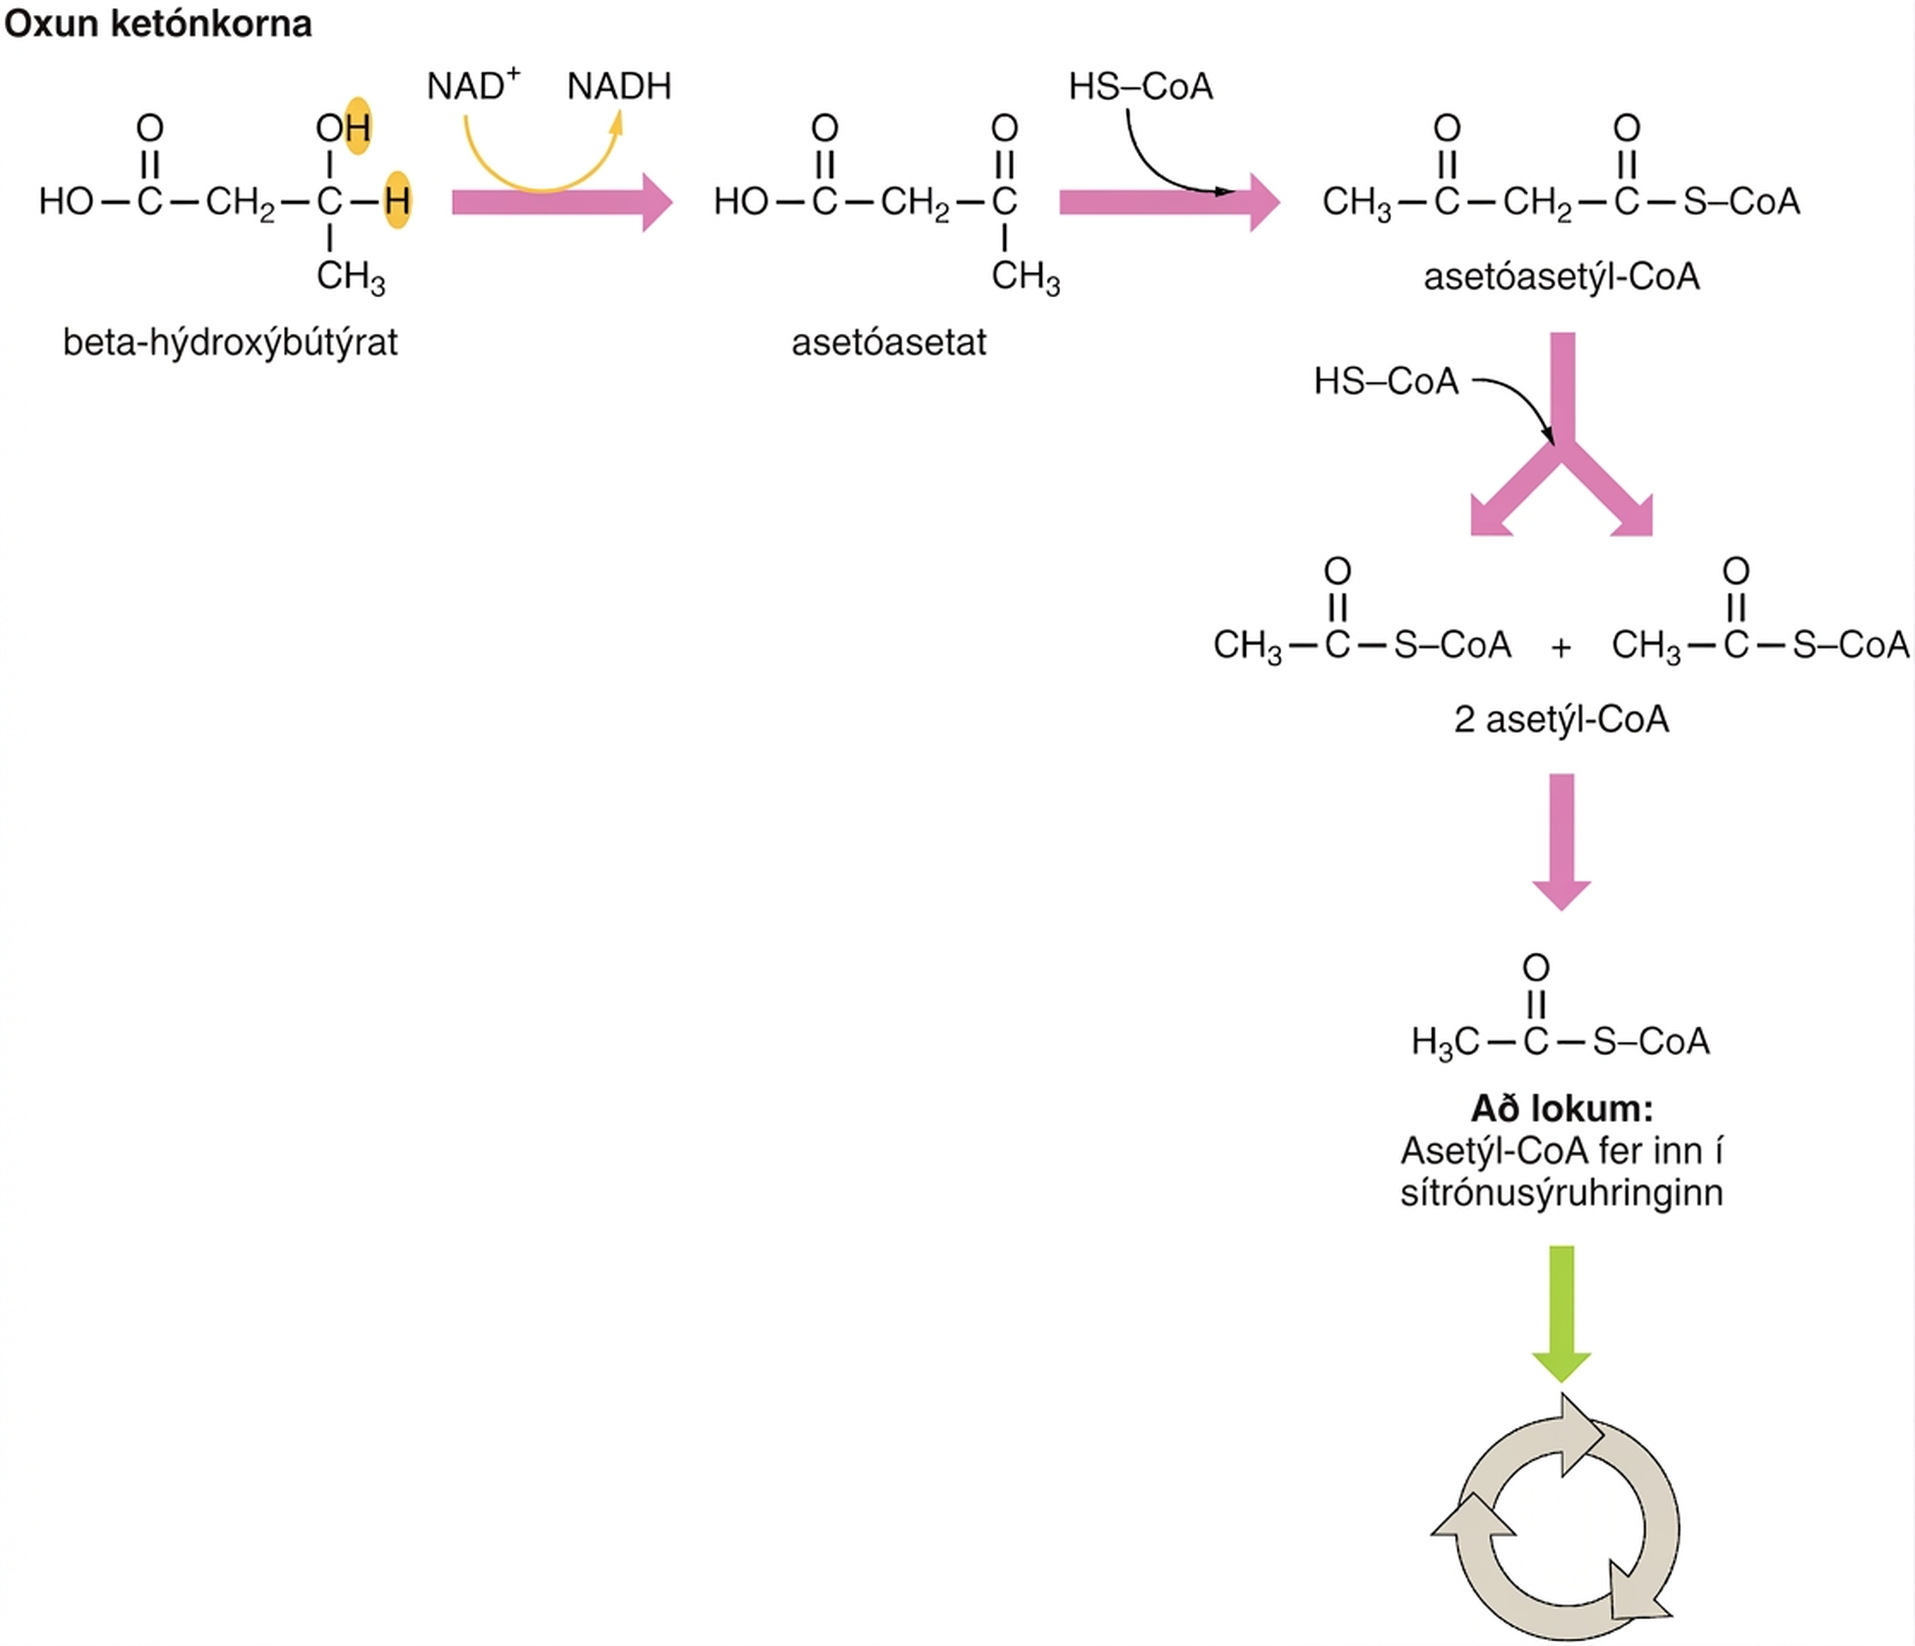
Heilinn notar glúkósa að jafnaði sem megineldsneyti en eykur notkun asetóasetats og beta-hýdroxýbútýrats við langvarandi föstu. Hjarta, beinagrindarvöðvar, nýrnabörkur og fleiri vefir geta einnig oxað þessi ketónkorn. Þegar myndun þeirra verður hraðari en nýting og útskilnaður safnast asetóasetat og beta-hýdroxýbútýrat í blóði og geta lækkað sýrustig þess. Asetóasetat getur jafnframt afkarboxýlerast í rokgjarnt aseton og CO2; asetonið skilst meðal annars út með útöndun og getur valdið ávaxtakenndri lykt af andardrætti. Ketónblóðsýring í sykursýki stafar af uppsöfnun asetóasetats og beta-hýdroxýbútýrats með tilheyrandi sýruframleiðslu, ekki af koltvísýringnum, og lykt af andardrætti ein og sér segir ekki hvort sykursýki sé vel stjórnað.
Í utanlifrarvefjum oxast beta-hýdroxýbútýrat í asetóasetat um leið og NAD+ afoxast í NADH. Súksínýl-CoA:3-oxósýru-CoA-transferasi (SCOT) flytur síðan CoA-hóp af súksínýl-CoA yfir á asetóasetat og myndar asetóasetýl-CoA og súksínat. Þíólasi bætir HS-CoA við asetóasetýl-CoA og klýfur það í tvær asetýl-CoA-sameindir. Þær fara í sítrónusýruhringinn og styðja ATP-myndun (mynd 24.15). Lifur skortir SCOT og getur því ekki nýtt ketónkornin sem hún myndar.
Fitumyndun
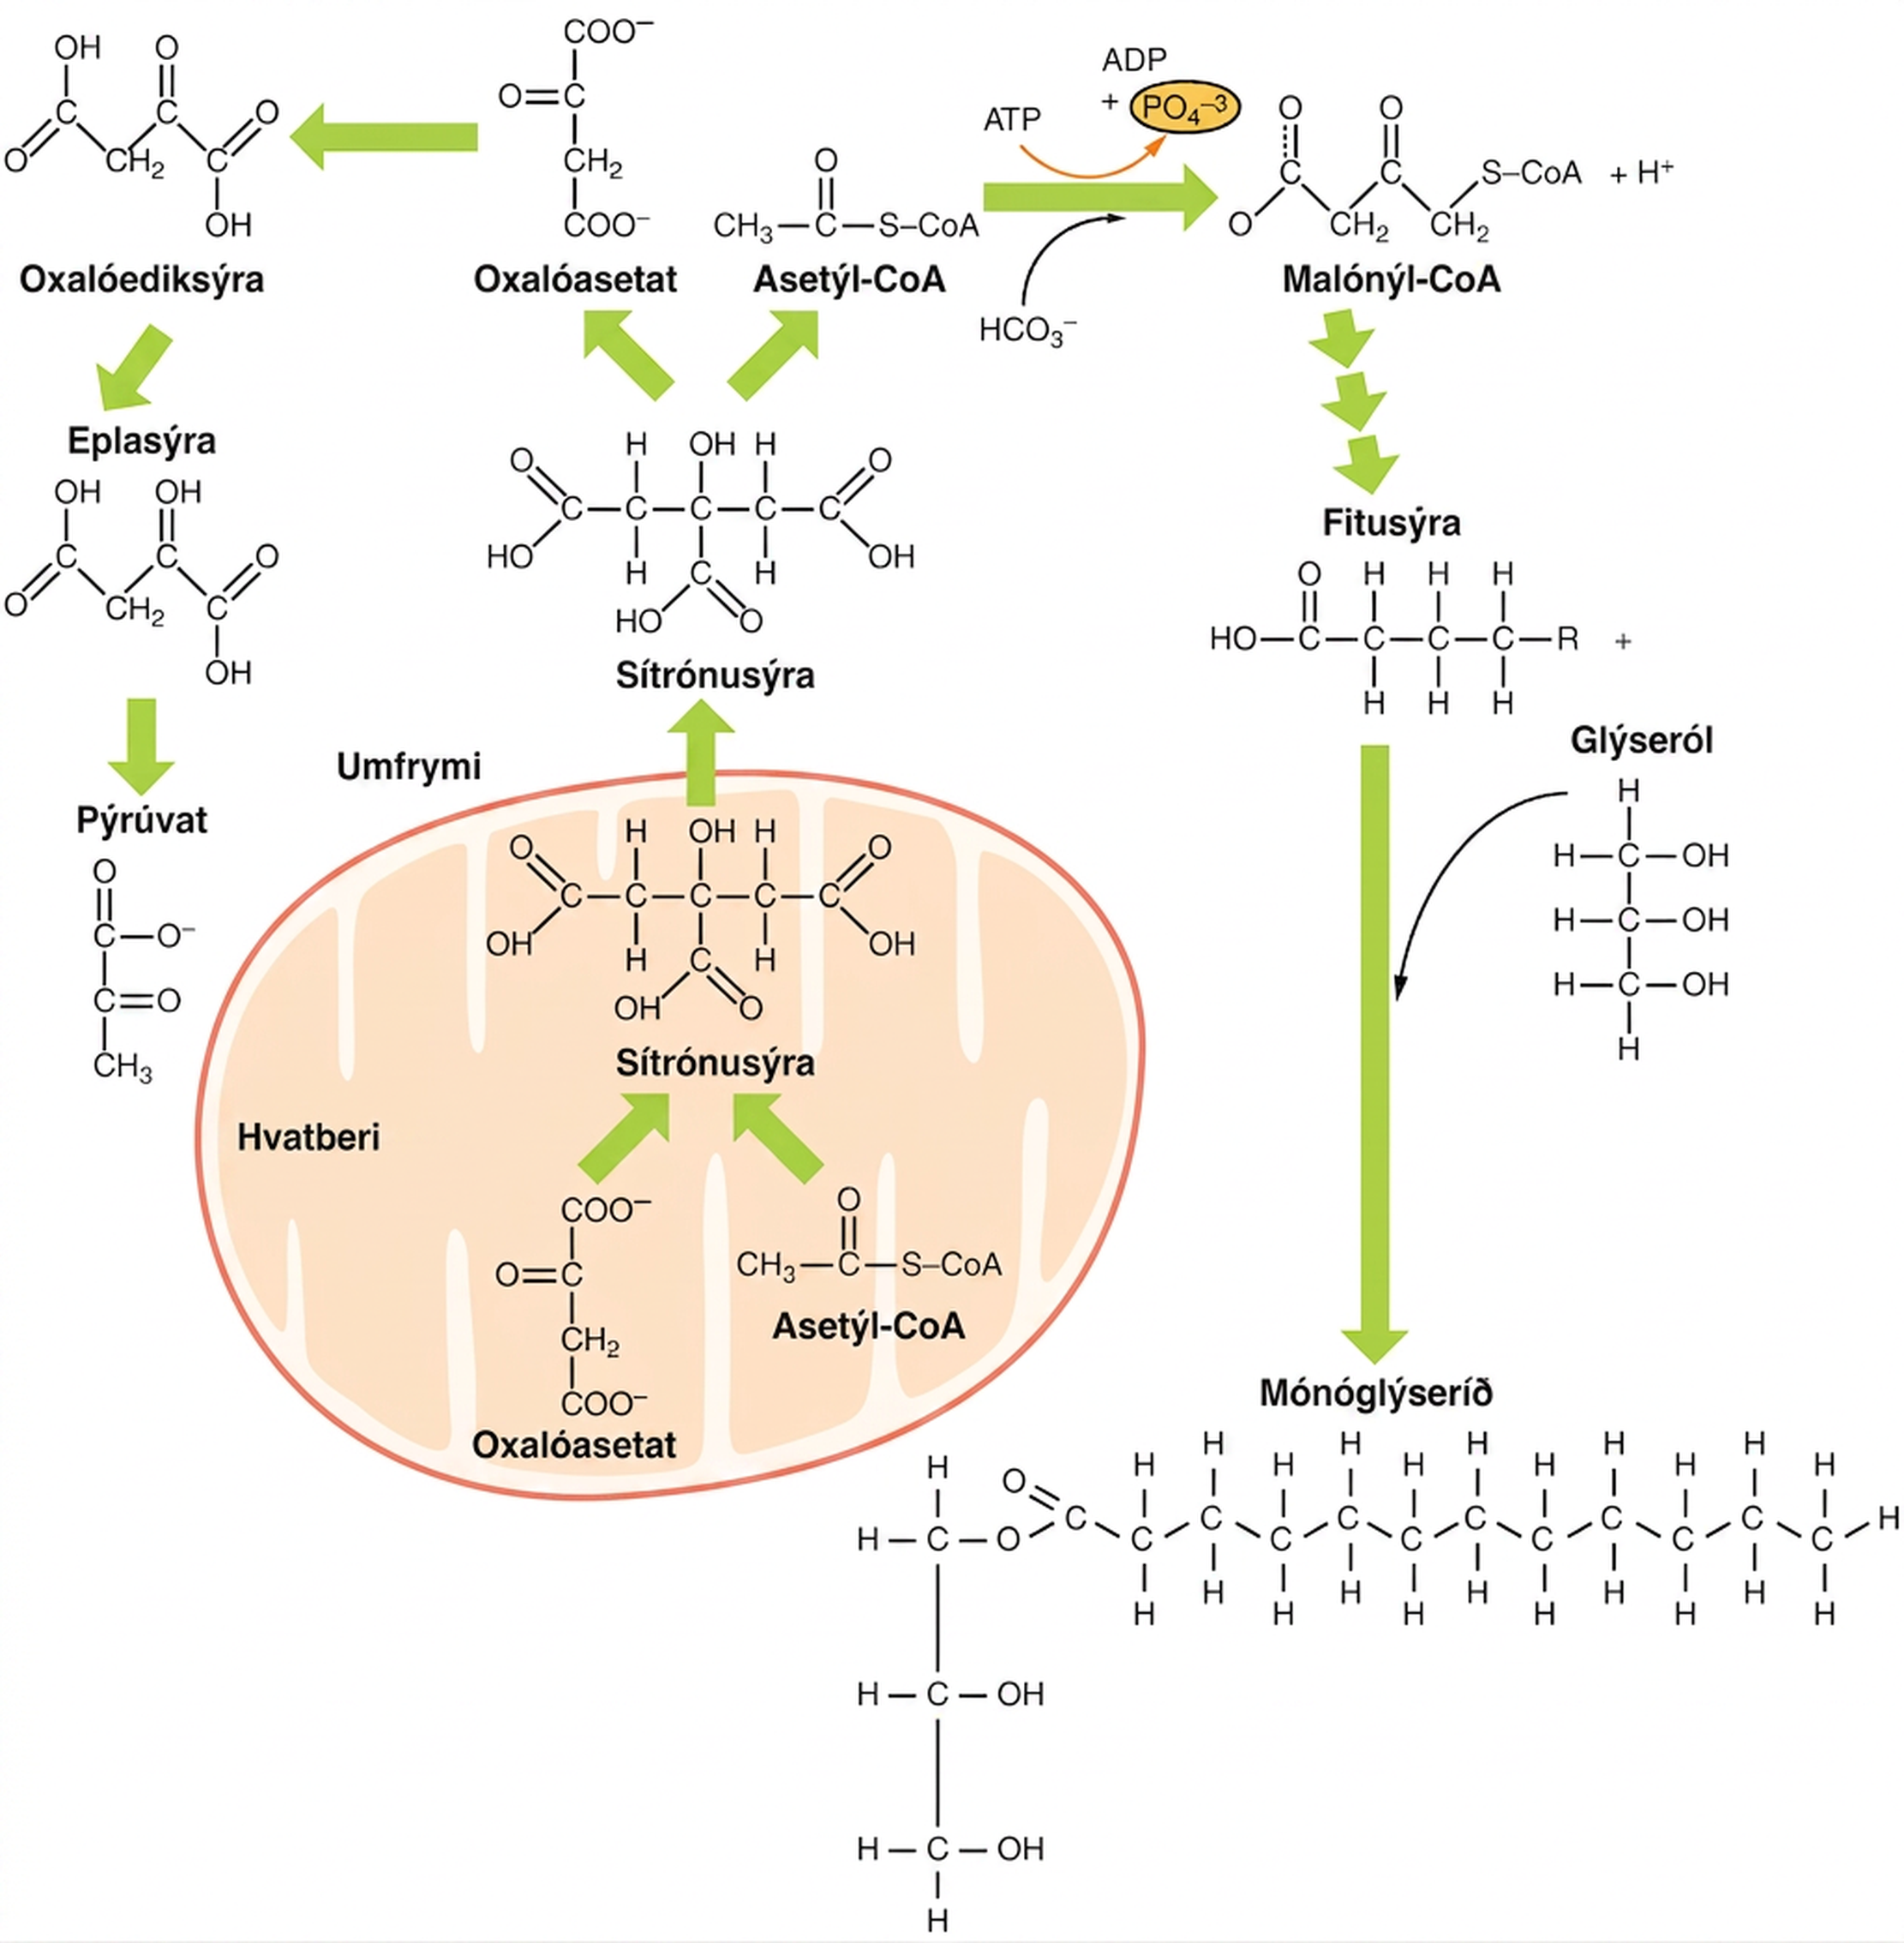
Þegar orku- og kolvetnaframboð er meira en tafarlaus þörf getur kolefni úr glúkósa farið um pýrúvat í asetýl-CoA og þaðan í fitusýrur. Fitusýrumyndun er meginþáttur fitumyndunar og fer fram í umfrymi, einkum í lifur en einnig í fituvef og öðrum vefjum eftir efnaskiptaástandi. Asetýl-CoA er einnig forveri kólesteróls og þar með sterahormóna og gallsýra, en kólesterólmyndun er sérstök efnaskiptaleið og ekki sama ferli og fitusýrumyndun. Kolefni asetýl-CoA er flutt úr hvatberum í umfrymi sem sítrat. Þar karboxýlerar asetýl-CoA-karboxýlasi asetýl-CoA í malónýl-CoA og notar ATP og bíótín. Fitusýrutengiensím (FAS) notar síðan asetýl-CoA sem upphafseiningu og bætir við tveggja kolefna einingum úr malónýl-CoA með afoxunarafli frá NADPH. Fitusýrur geta síðan verið esteraðar með glýseról-3-fosfati í þríglýseríð og geymdar í fitudropum; þríglýseríðin mynda þéttan orkuforða en myndun þeirra sjálf krefst bæði ATP og NADPH.
Asetýl-CoA myndast í hvatberagrunnfrymi en kemst ekki beint yfir innri hvatberahimnuna. Pýrúvatdehýdrógenasafléttan myndar asetýl-CoA úr pýrúvati en pýrúvatkarboxýlasi myndar oxalóasetat í sérstöku hvarfi. Oxalóasetat og asetýl-CoA mynda sítrat, sem flyst um sítratferju í umfrymi. Þar klýfur ATP-sítratlýasi sítratið aftur í oxalóasetat og asetýl-CoA. Oxalóasetat afoxast í malat, sem getur annaðhvort farið aftur inn í hvatbera eða umbreyst í pýrúvat fyrir tilstilli malatensíms og myndað NADPH. Pýrúvat getur þá farið aftur inn í hvatbera. Asetýl-CoA-karboxýlasi umbreytir asetýl-CoA í malónýl-CoA, og fitusýrutengiensím (FAS) notar malónýl-CoA ásamt asetýl-CoA og NADPH til fitusýrumyndunar. Mynd 24.16 dregur saman helstu leiðir fituefnaskipta.