24.2 Efnaskipti kolvetna
24.2 Efnaskipti kolvetna
Námsmarkmið
Eftir lestur þessa hluta átt þú að geta:
- útskýrt ferli sykurrofs
- lýst ferli pýrúvatsameindar um sítrónusýruhringinn
- útskýrt flutning rafeinda um rafeindaflutningskeðjuna
- lýst ATP-myndun með oxunarfosfórun
- dregið saman ferli glúkósanýmyndunar
Kolvetni eru lífrænar sameindir sem innihalda einkum kolefni, vetni og súrefni. Til þeirra teljast einsykrur, svo sem glúkósi og frúktósi, tvísykrur og fjölsykrur. Sterkja og glýkógen eru fjölsykrur sem geyma orku, en beðmi í plöntum og kítín í mörgum hryggleysingjum hafa einkum byggingarhlutverk. Flokkunin „einfaldur“ eða „flókinn sykur“ er aðeins gróf næringarfræðileg stytting og lýsir ekki öllum eiginleikum kolvetna.
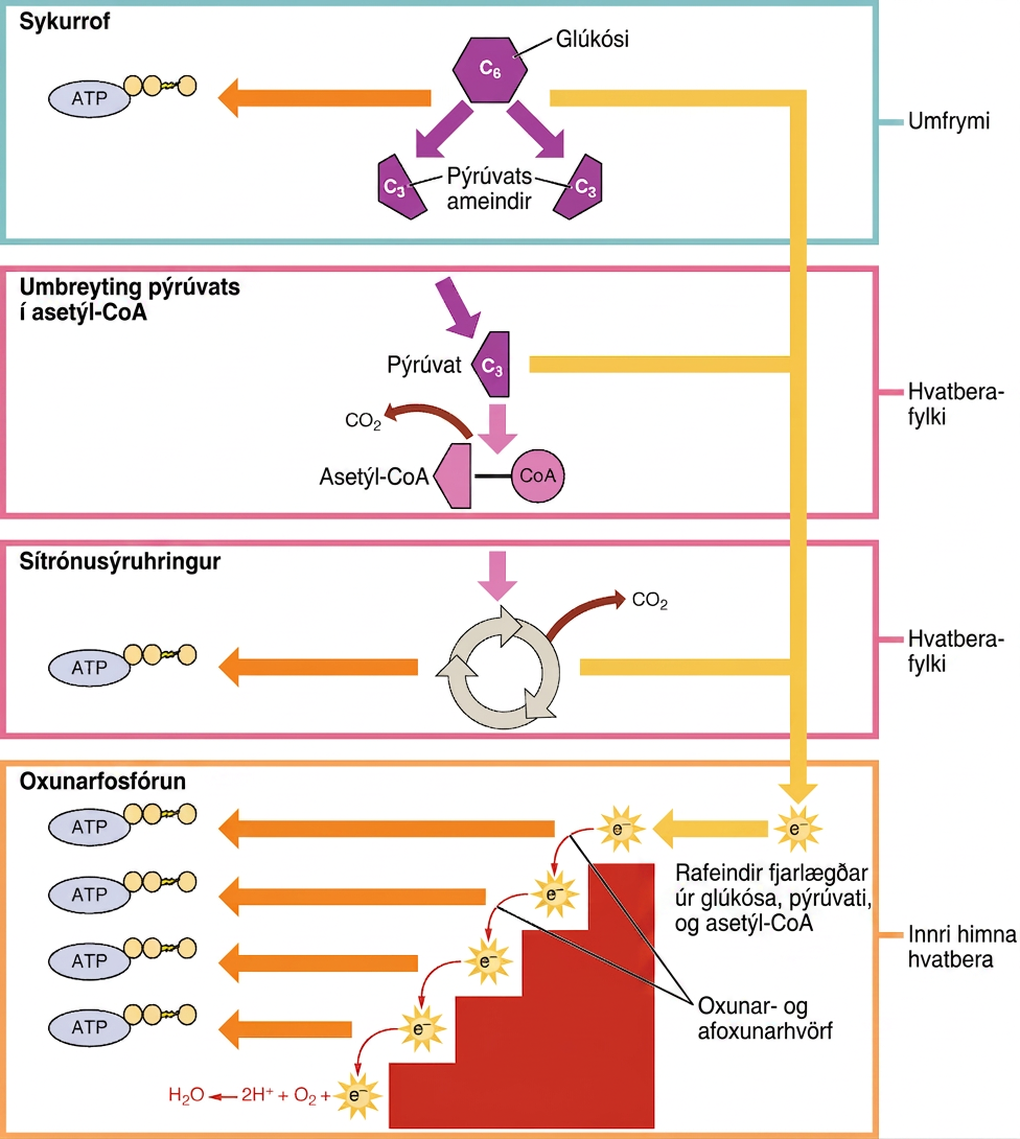
Við meltingu eru meltanleg kolvetni klofin í einsykrur sem frásogast um þekju smáþarma og berast með blóði til vefja. Melting sterkju hefst fyrir áhrif munnvatnsamýlasa og lýkur með bris- og burstaborðsensímum í smáþörmum. Frumur geta síðan unnið orku úr glúkósa með frumuöndun (mynd 24.4). Fyrsta stigið er sykurrof (glýkólýsa), þar sem glúkósi oxast að hluta og hluti breytingarinnar á frjálsri orku varðveitist í ATP og NADH; orkan losnar ekki einfaldlega við rof einstakra efnatengja.
Sykurrof
Glúkósi er mikilvægt hvarfefni til ATP-myndunar en aðgengi og upptaka ráðast af vef og efnaskiptaástandi. Einsykrur úr meltingu berast fyrst með lifrarportæðakerfinu til lifrar. Lifrin getur tekið upp, losað eða geymt glúkósa sem glýkógen, en glúkósaupptaka allra líkamsfrumna er ekki háð insúlíni; insúlín örvar einkum GLUT4-miðlaða upptöku í beinagrindarvöðva og fituvef. Insúlín örvar einnig glýkógenmyndun og hamlar glúkósanýmyndun og glýkógenrofi í lifur. Glúkagon örvar einkum glýkógenrof og glúkósanýmyndun í lifur, en adrenalín getur örvað glýkógenrof bæði í lifur og vöðvum. Vöðvar nota sitt eigið glýkógen, enda skortir þá glúkósa-6-fosfatasa til að losa frjálsan glúkósa í blóð. Í sykurrofi umbreytist glúkósi í röð tíu ensímhvarfa í tvær pýrúvatsameindir og nettó myndast tvær ATP-sameindir og tvær NADH-sameindir (mynd 24.5). Lokaafurð hvors þriggja kolefna arms ferlisins er pýrúvat.
Sykurrof hefst þegar hexókínasi, eða glúkókínasi í tilteknum vefjum, fosfórar glúkósa í glúkósa-6-fosfat og notar eina ATP-sameind. Glúkósa-6-fosfati er umbreytt í frúktósa-6-fosfat. Fosfófrúktókínasi 1 notar aðra ATP-sameind til að mynda frúktósa-1,6-bisfosfat. Sameindinni með sex kolefnisatóm er síðan skipt í glýseraldehýð-3-fosfat og díhýdroxýasetónfosfat, sem umbreytist einnig í glýseraldehýð-3-fosfat. Hvort glýseraldehýð-3-fosfat er oxað og fær ólífrænt fosfat til að mynda 1,3-bisfosfóglýserat; við það afoxast NAD+ í NADH. Í síðari hvarfröðinni flytjast fosfathópar á tvær ADP-sameindir og mynda fjórar ATP-sameindir. Sykurrof notar því tvær ATP-sameindir en myndar fjórar ATP-sameindir; nettóafraksturinn er tvær ATP-sameindir, tvær NADH-sameindir og tvær pýrúvatsameindir. Þegar hvatberar og súrefni eru tiltæk getur pýrúvat farið í oxun pýrúvats og síðan sítrónusýruhringinn, einnig nefndan Krebs- eða þríkarboxýlsýruhring.
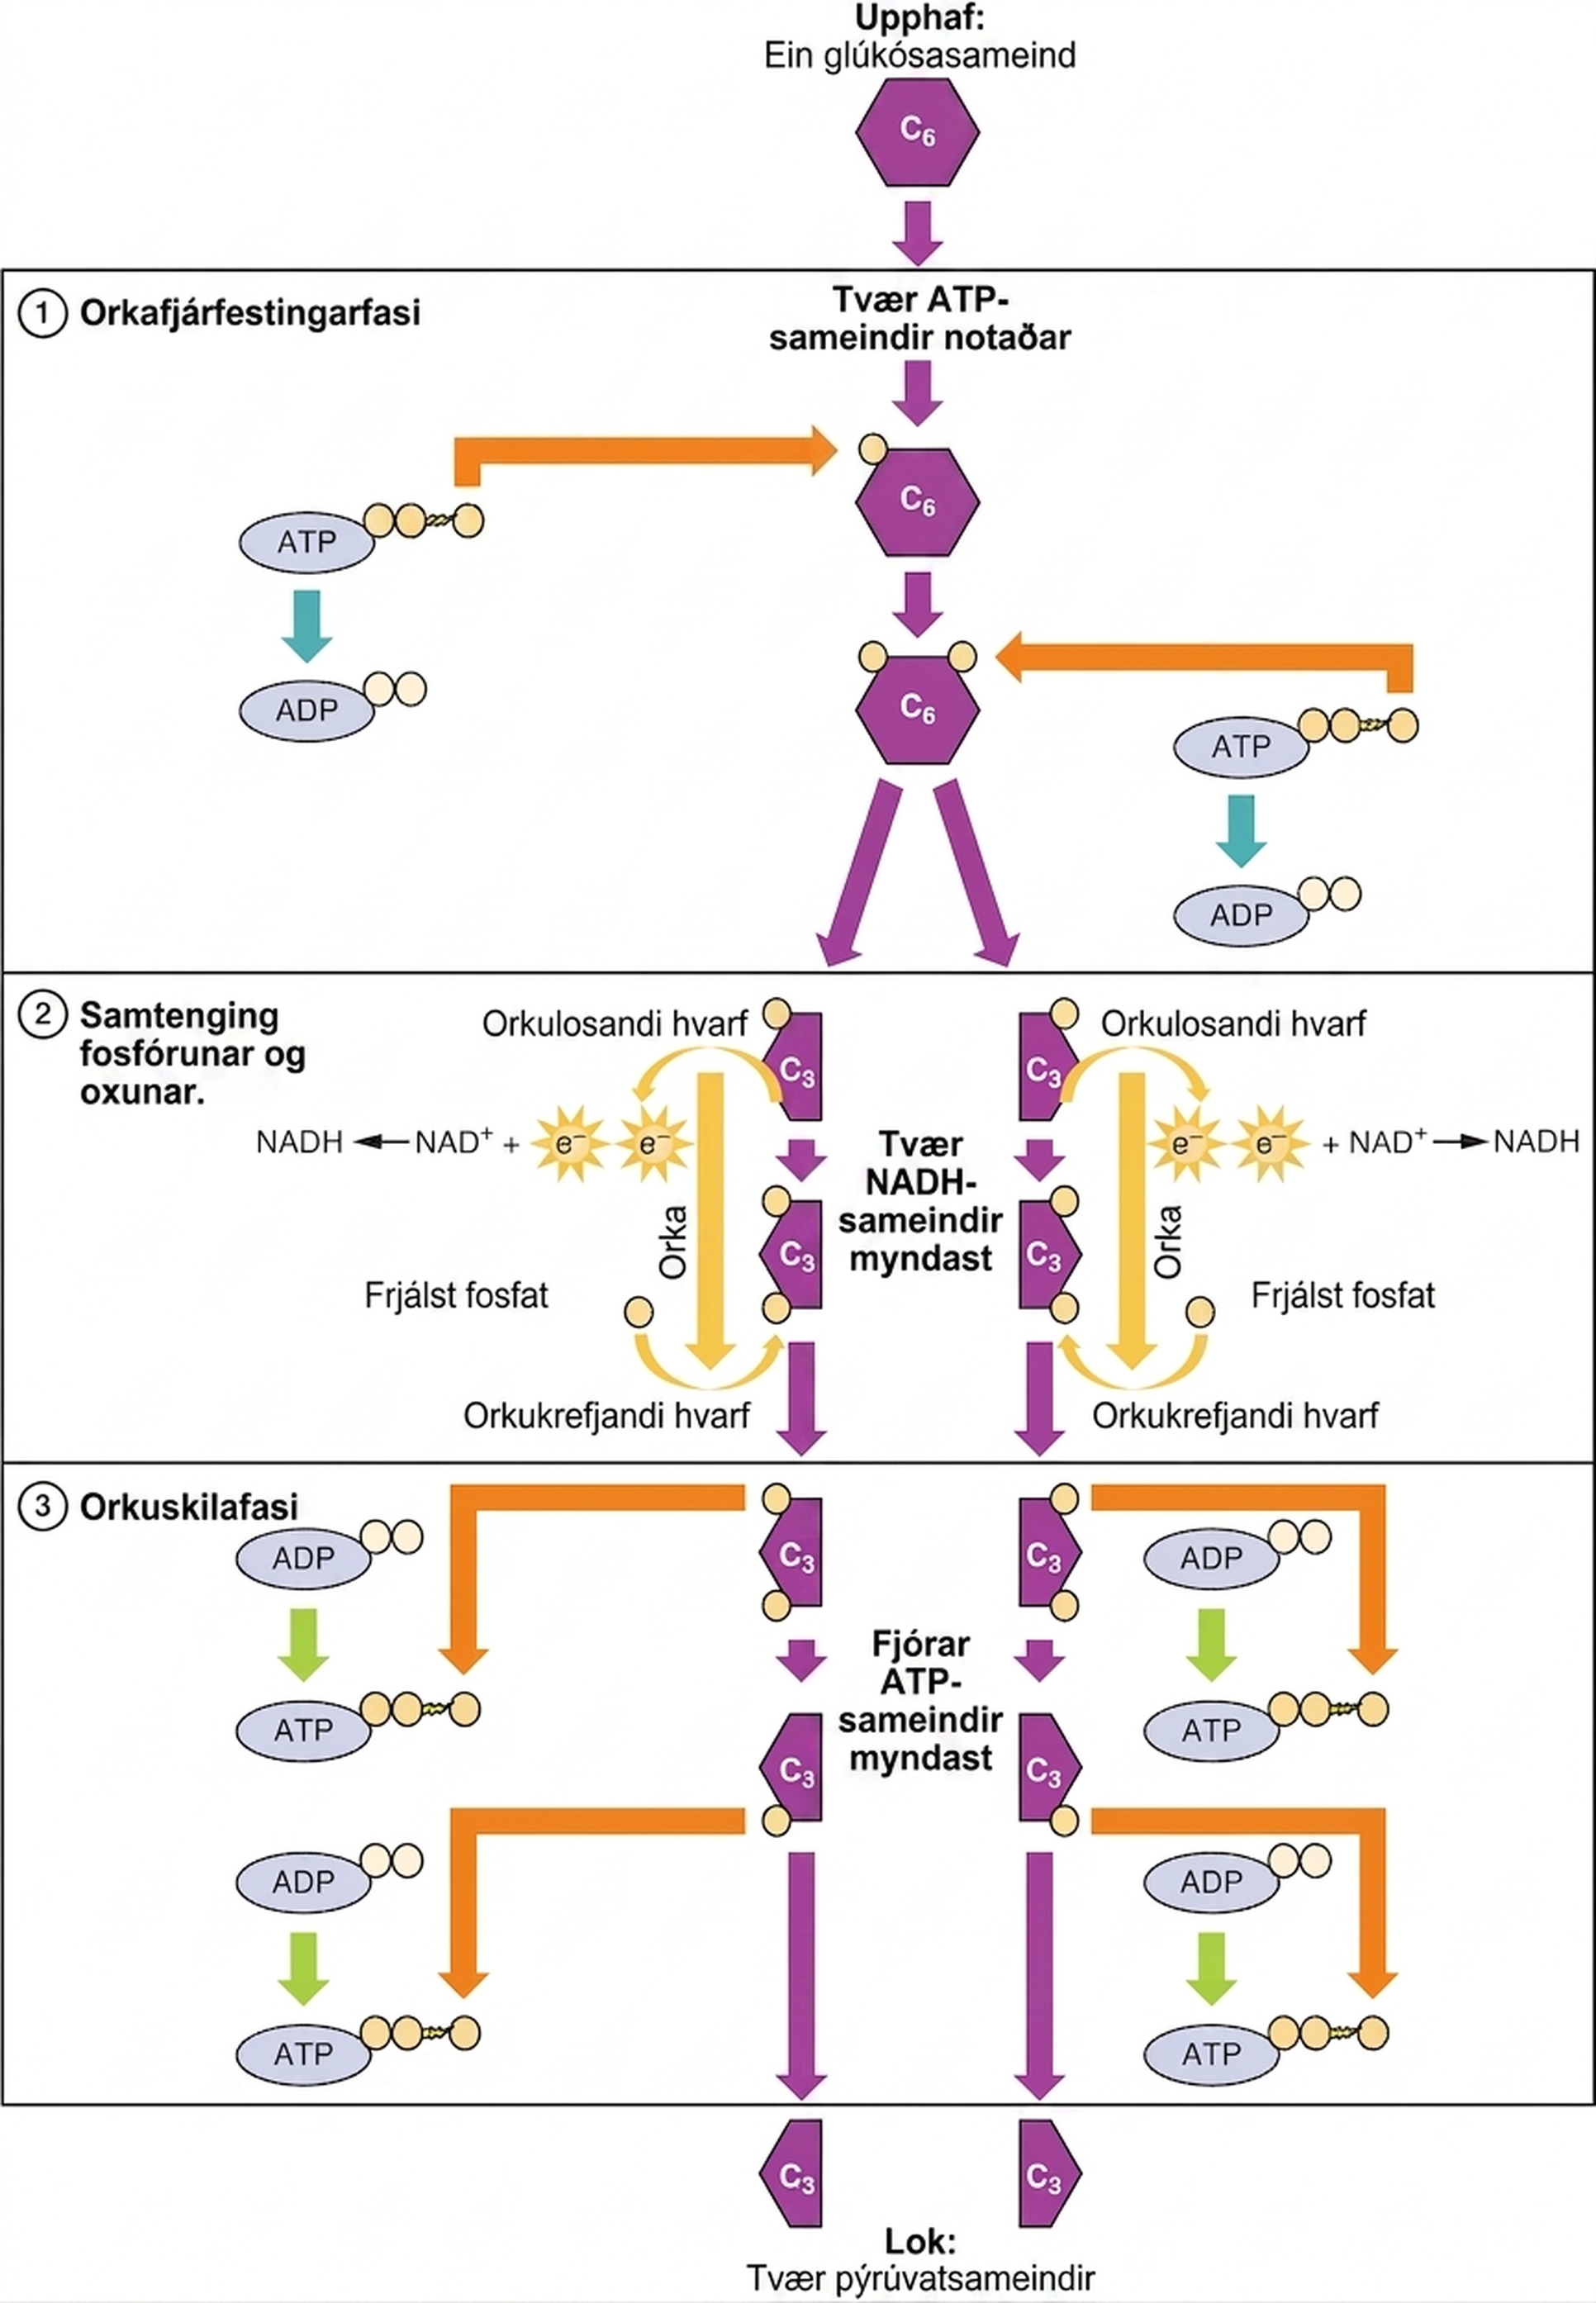
Sykurrofi má skipta í orkufjárfestingarfasa og orkuskilafasa. Tvær ATP-sameindir eru notaðar í fyrri fasanum en fjórar ATP-sameindir myndast í þeim síðari. Nettóafraksturinn er því tvær ATP-sameindir á hverja glúkósasameind, auk tveggja NADH-sameinda og tveggja pýrúvatsameinda.
Heildarhvarf sykurrofs má rita þannig:
Nettójafnan sýnir að glúkósi hvarfast við tvær ADP-sameindir, tvö ólífræn fosföt og tvær NAD+-sameindir sem taka við afoxunarígildum. Myndefnin eru tvær pýrúvatsameindir, tvær ATP-sameindir nettó, tvær NADH, tvær H+ og tvær vatnssameindir. NADH flytur afoxunarígildi sem síðar geta lagt rafeindir til oxunarfosfórunar; það er ekki sjálfstæð „orkugeymsla“ sambærileg langtímabirgðum.
Þegar glúkósi kemur inn í frumu fosfórar hexókínasi hann hratt í glúkósa-6-fosfat; í lifur og betafrumum briss gegnir glúkókínasi skyldu hlutverki. Kínasar flytja fosfathóp, oft frá ATP, á hvarfefni. Fosfórunin notar eina ATP-sameind og glúkósa-6-fosfat fer ekki út um venjulegar glúkósaferjur. Hún heldur þannig fríum glúkósa lágum í frumunni og styður áframhaldandi upptöku þegar flutningsstigull og ferjur leyfa. Hexókínasar í flestum vefjum hafa meiri sækni í glúkósa en glúkókínasi; glúkókínasi vinnur sérstaklega við hærri glúkósastyrk og styður skynjun og vinnslu glúkósa eftir máltíð.
Glúkósa-6-fosfatisómerasi umbreytir glúkósa-6-fosfati í frúktósa-6-fosfat. Fosfófrúktókínasi-1 notar síðan ATP til að mynda frúktósa-1,6-bisfosfat. Aldólasi klýfur frúktósa-1,6-bisfosfat í glýseraldehýð-3-fosfat og díhýdroxýasetónfosfat. Tríósafosfatisómerasi umbreytir hinu síðara í aðra glýseraldehýð-3-fosfatsameind. Í lok orkufjárfestingarfasans hafa því myndast tvær glýseraldehýð-3-fosfatsameindir úr einum glúkósa.
Í orkuskilafasanum oxar glýseraldehýð-3-fosfatdehýdrógenasi hvora glýseraldehýð-3-fosfatsameind og myndar 1,3-bisfosfóglýserat. NAD+ tekur við afoxunarígildi og verður NADH; tvær NADH myndast á hvern glúkósa. Fosfóglýseratkínasi flytur síðan fosfathóp frá hvoru 1,3-bisfosfóglýserati á ADP og myndar 3-fosfóglýserat og ATP. Þetta er hvarfefnisstigsfosfórun og gefur tvær ATP-sameindir á þessu þrepi.
Fosfóglýseratmútasi umbreytir 3-fosfóglýserati í 2-fosfóglýserat. Enólasi myndar síðan fosfóenólpýrúvat úr 2-fosfóglýserati. Að lokum flytur pýrúvatkínasi fosfathóp af tveimur fosfóenólpýrúvatsameindum á ADP og myndar tvær pýrúvatsameindir og tvær ATP-sameindir.
Samanlagt gefur sykurrof úr einum glúkósa tvær pýrúvatsameindir, nettó tvær ATP-sameindir og tvær NADH-sameindir. Síðan má oxa pýrúvat í asetýl-CoA fyrir sítrónusýruhringinn, afoxa það í laktat til að endurmynda NAD+ þegar þess þarf eða nýta það síðar sem hvarfefni glúkósanýmyndunar. Gerfrumur og sumar örverur geta myndað etanól, en frumur manna gera það ekki.
Laktatgerjun
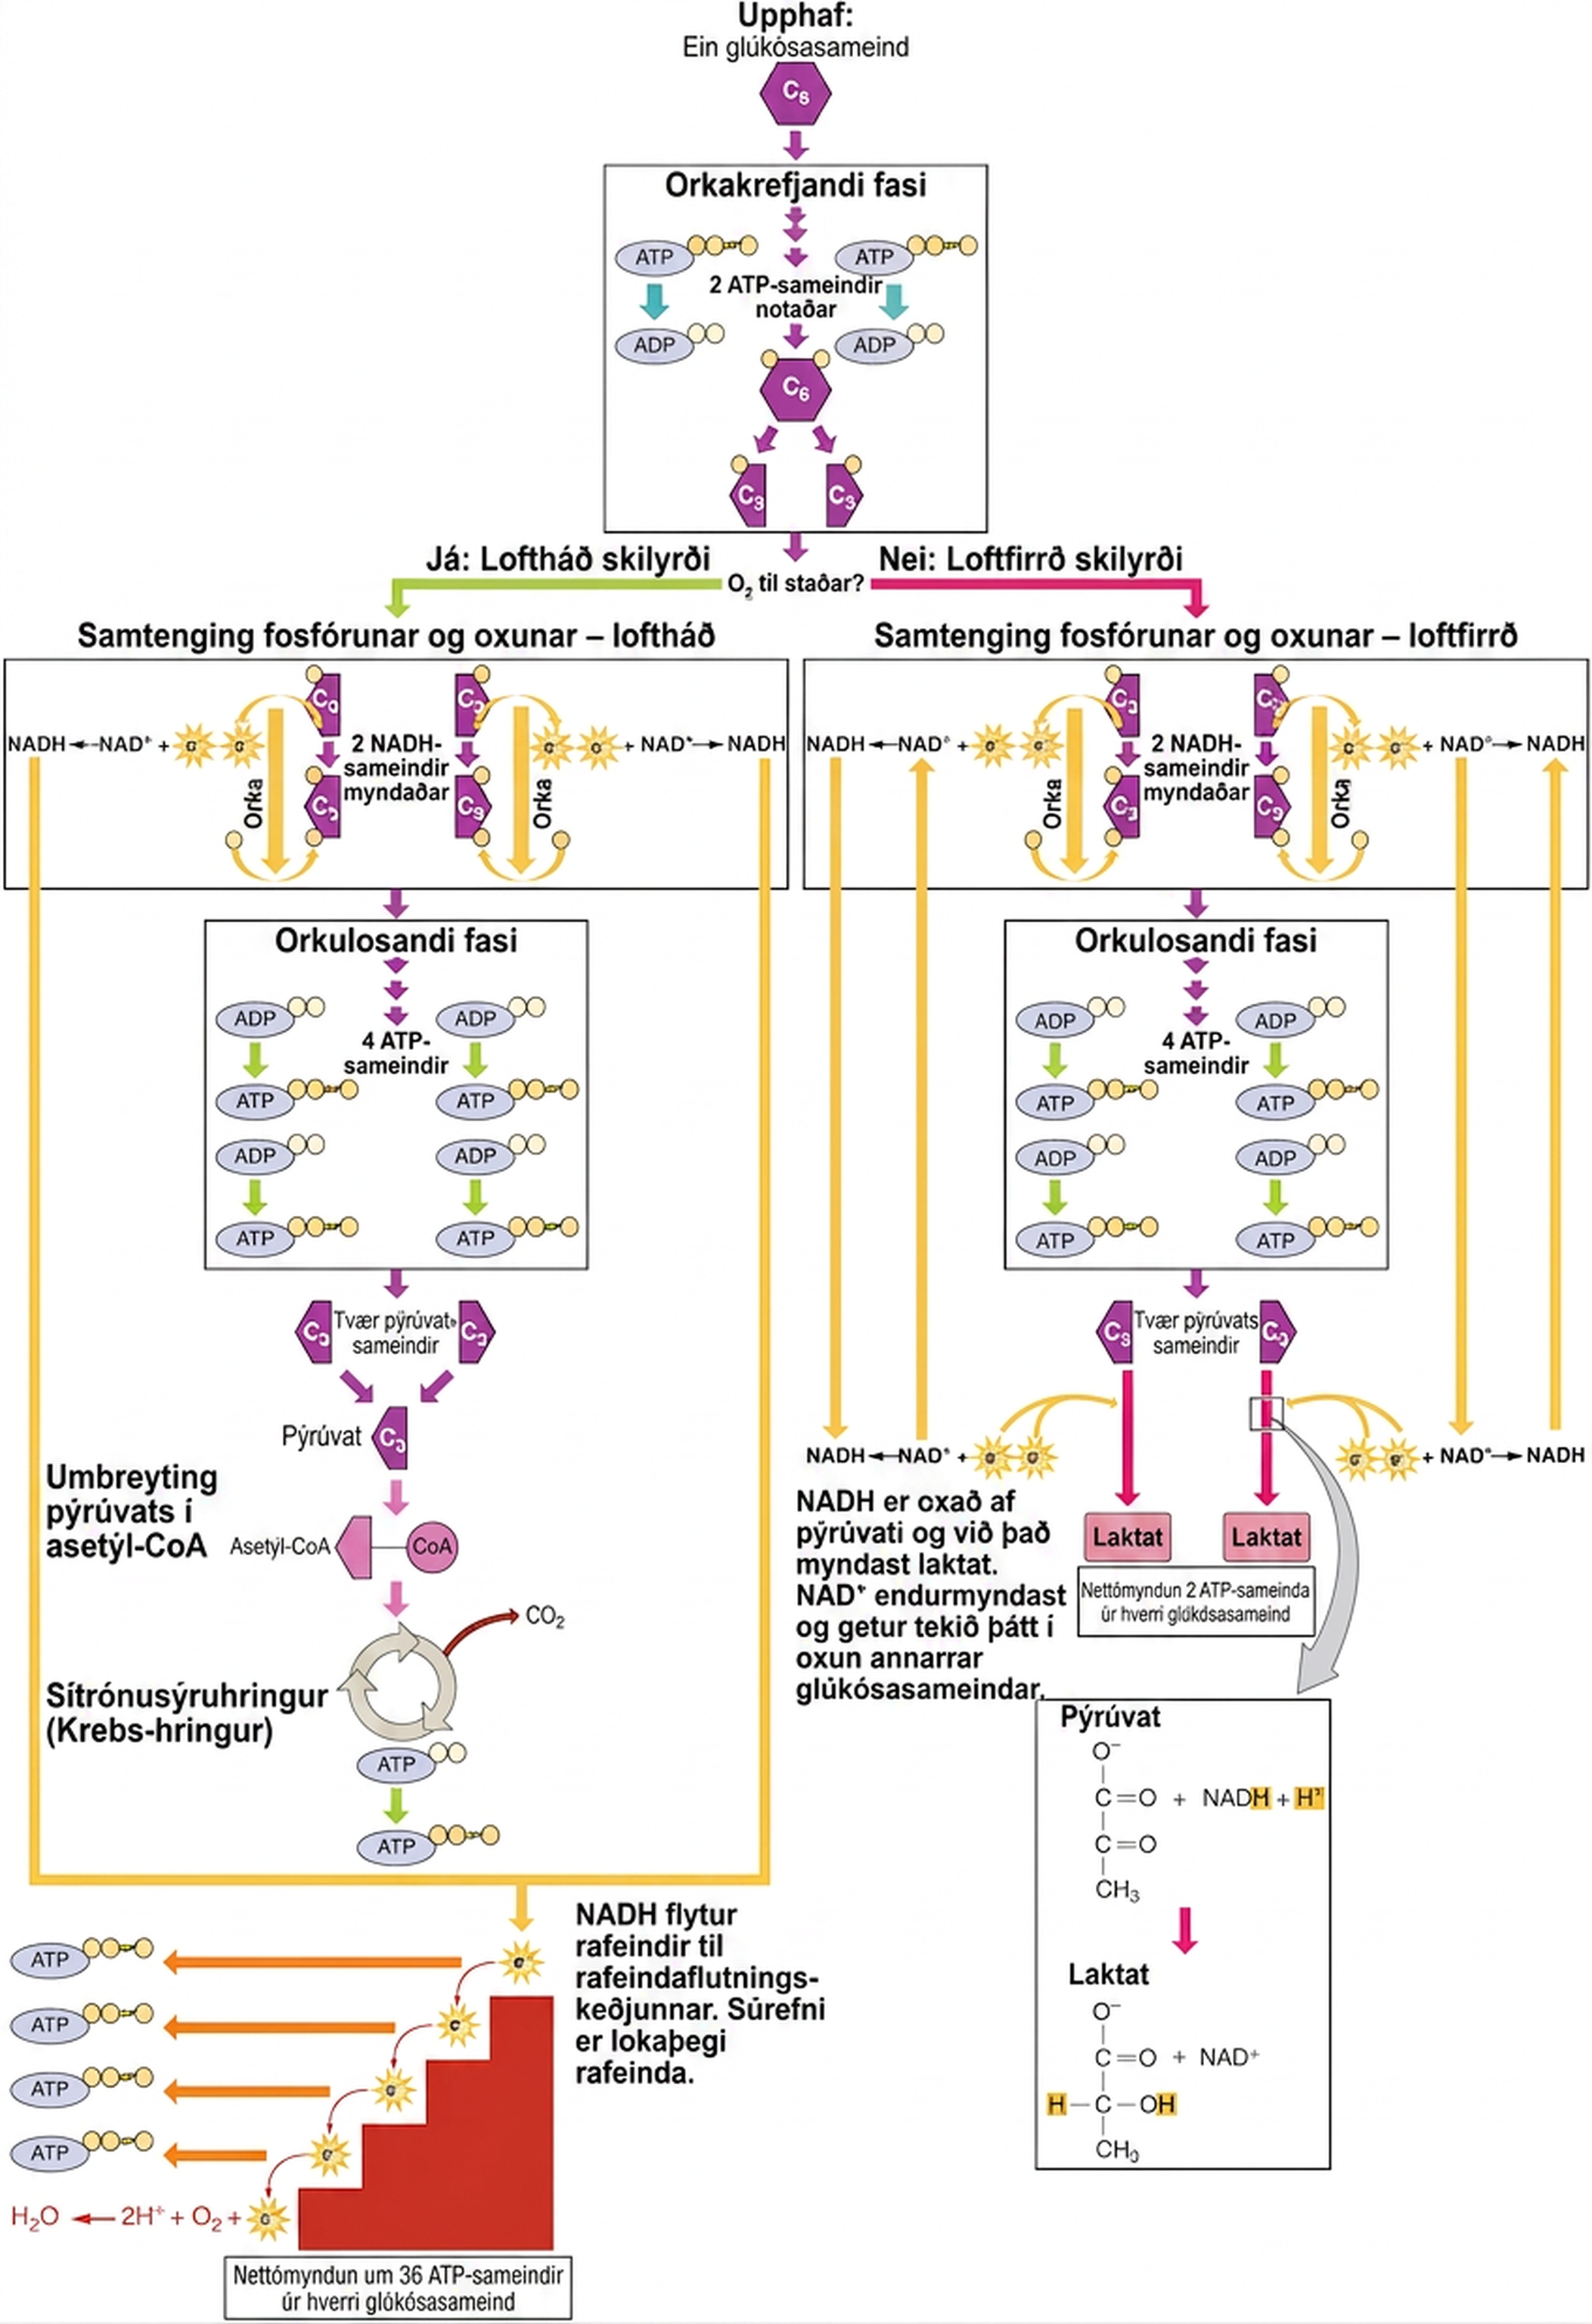
Sykurrof þarf ekki súrefni. Þegar oxunarfosfórun getur ekki enduroxað NADH nægilega hratt, eða hvatberar vantar eins og í rauðkornum, afoxar laktatdehýdrógenasi pýrúvat í laktat og endurmyndar NAD+. Pýrúvat, ekki laktat, tekur þá við afoxunarígildinu; laktat kemur ekki í stað súrefnis sem lokaþegi rafeindaflutningskeðjunnar. Ferlið viðheldur sykurrofi og hraðri ATP-myndun en afraksturinn er áfram aðeins nettó tvær ATP-sameindir á hvern glúkósa. Laktat getur farið í blóð, nýst öðrum vefjum sem eldsneyti eða borist til lifrar og nýrna þar sem kolefni þess getur farið í glúkósanýmyndun, meðal annars í Cori-hringrás. Vinnandi vöðvar mynda laktat jafnvel þegar súrefni er til staðar; myndunin endurspeglar jafnvægi milli framleiðslu og oxunar pýrúvats og NADH en ekki einfaldlega súrefnisleysi.
Loftháð frumuöndun
Þegar hvatberar og súrefni eru tiltæk er pýrúvat flutt í hvatberagrunnfrymið og oxað í asetýl-CoA áður en það fer í sítrónusýruhringinn. NAD+ og FAD taka við afoxunarígildum, en GDP er hvarfefni við hvarfefnisstigsfosfórun (mynd 24.6). Við oxun pýrúvats og hringinn myndast CO2, NADH, FADH2 og GTP eða ATP. NADH og FADH2 leggja rafeindir til rafeindaflutningskeðjunnar, sem myndar prótónuhreyfikraft fyrir ATP-syntasa. Súrefni er lokaþegi rafeinda og myndar vatn.
Sítrónusýruhringur (Krebs-hringur eða þríkarboxýlsýruhringur, TCA)
Pýrúvatsameindirnar sem myndast við sykurrof eru fluttar inn í hvatberagrunnfrymið. Þar oxar pýrúvatdehýdrógenasafléttan þær fyrst í asetýl-CoA. Asetýlhópurinn fer síðan inn í sítrónusýruhringinn, sem einnig nefnist Krebs-hringur eða þríkarboxýlsýruhringur (TCA-hringur; mynd 24.7). Í oxun pýrúvats og sítrónusýruhringnum myndast CO2, NADH, FADH2 og GTP eða ATP. NADH og FADH2 flytja rafeindir til rafeindaflutningskeðjunnar, þar sem frjáls orka rafeindaflutnings er notuð til að mynda prótónustigul sem knýr ATP-myndun.
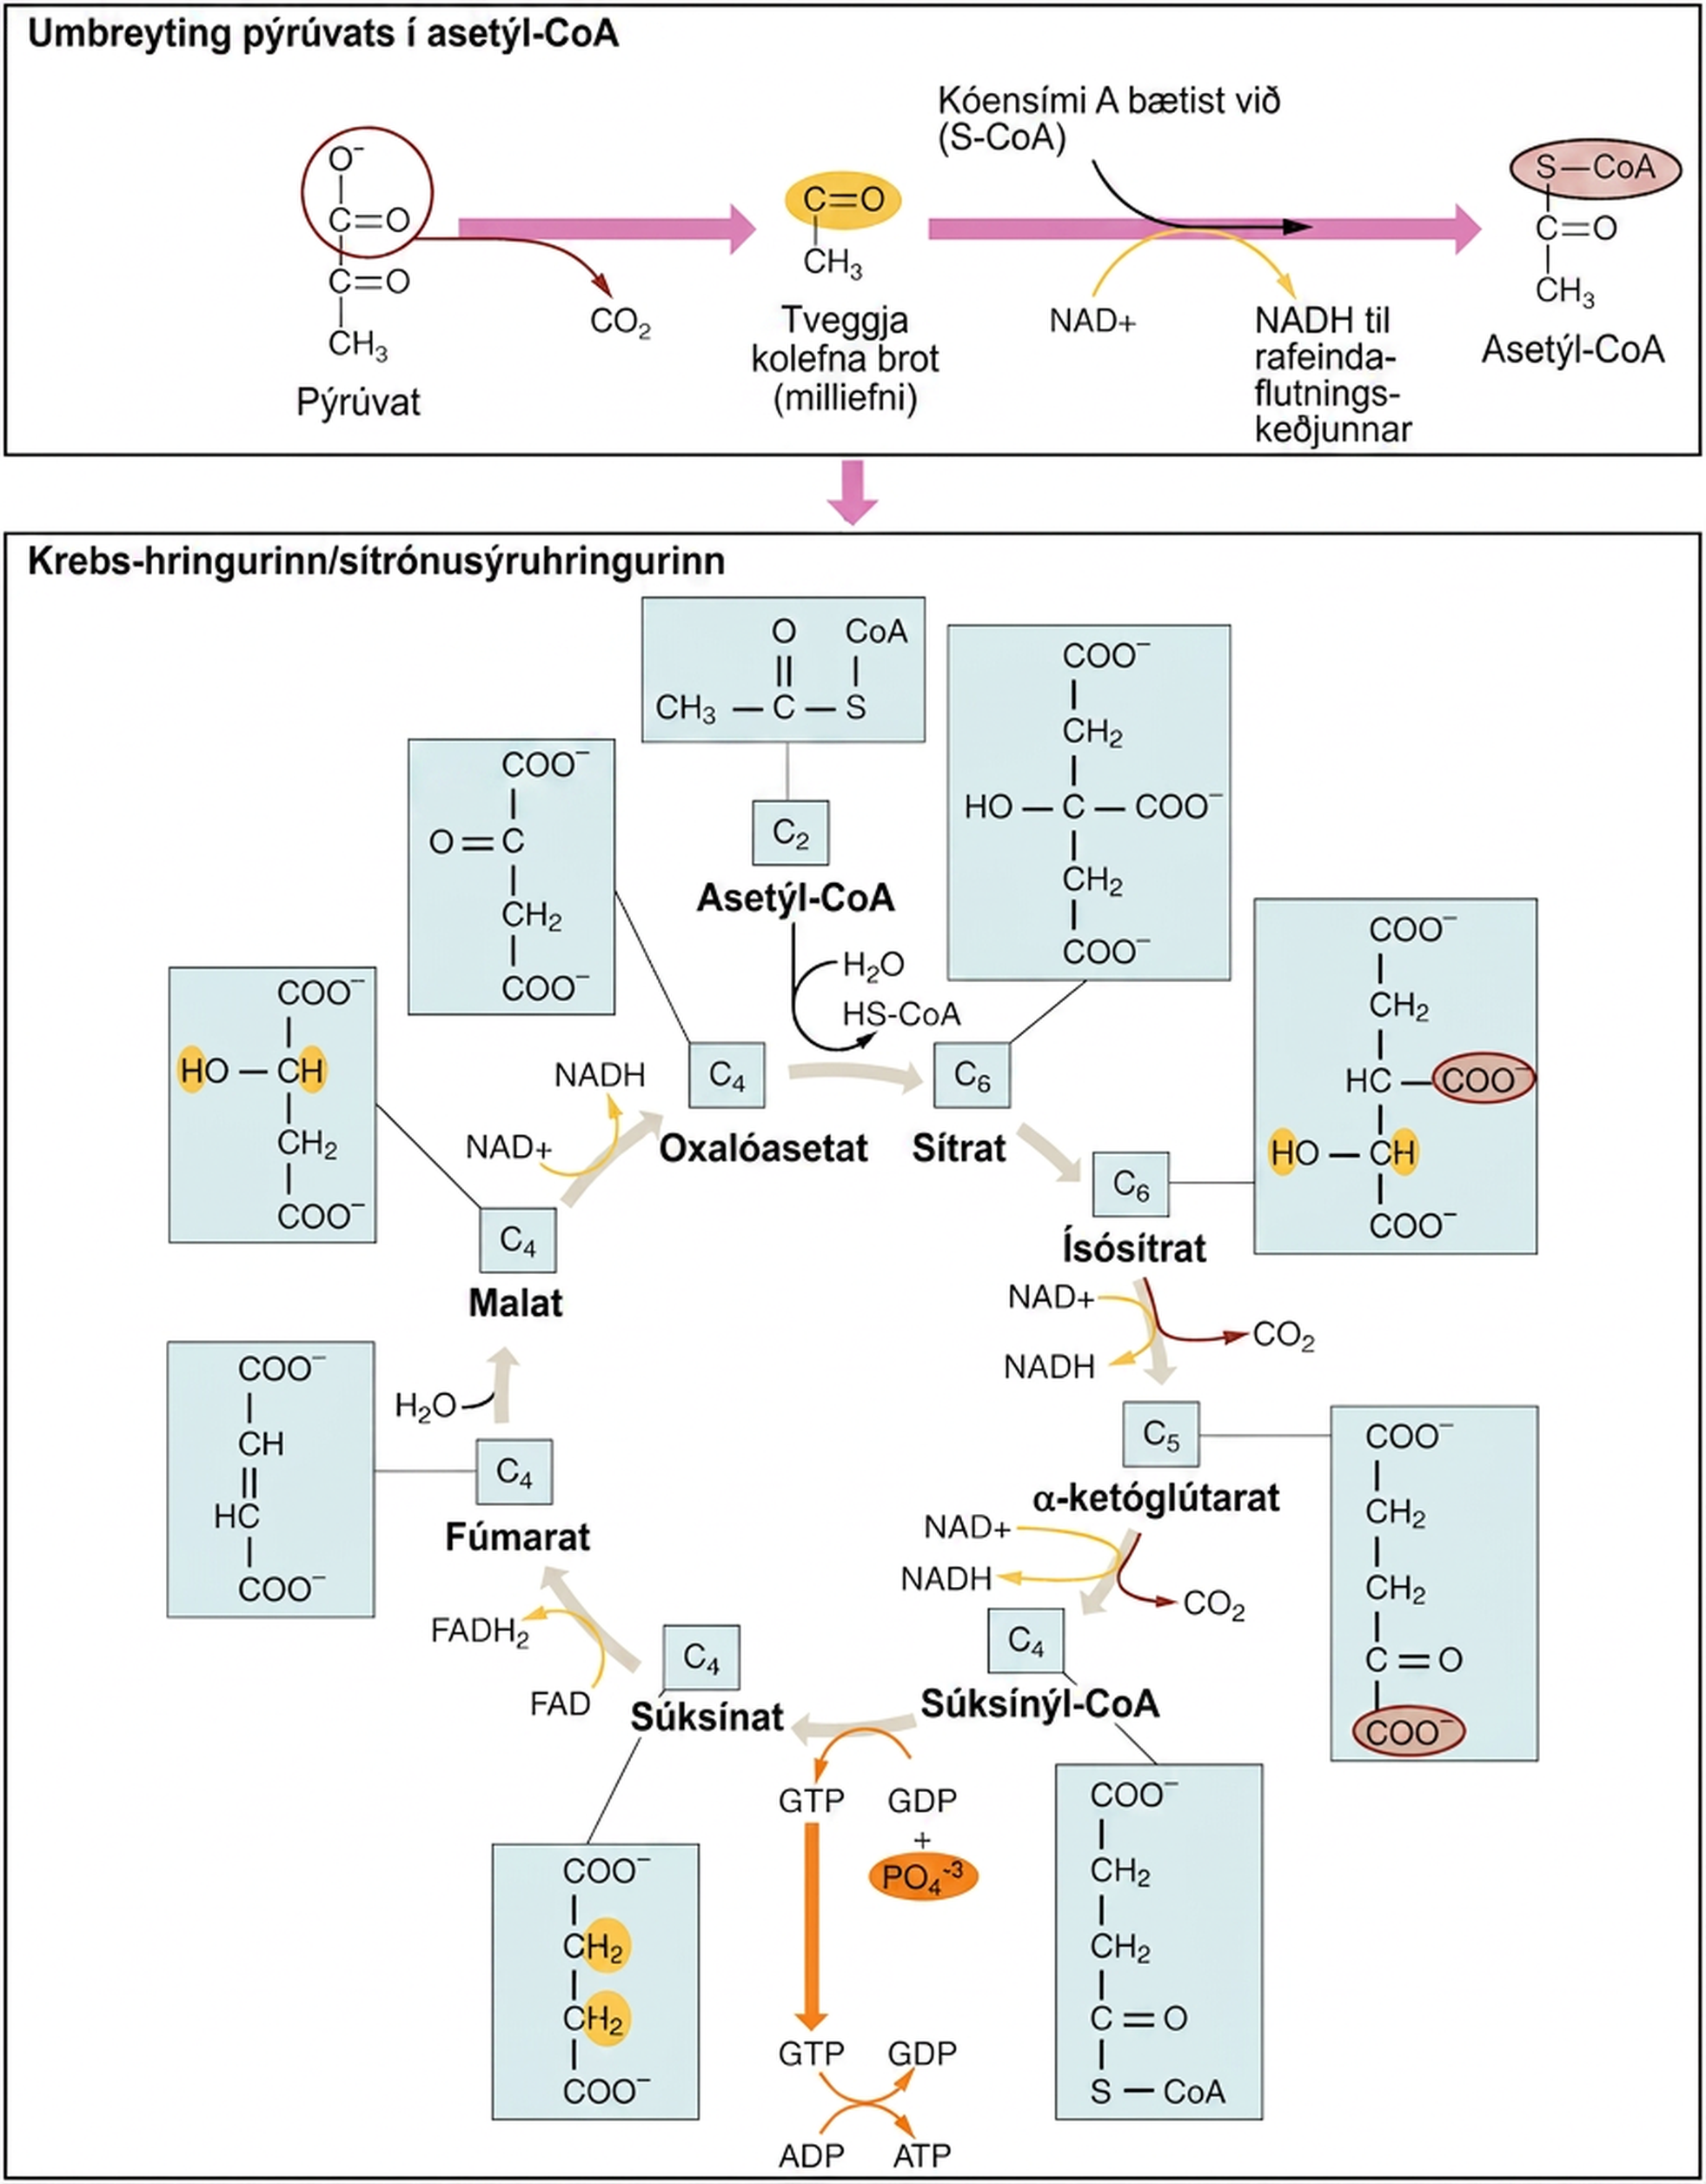
Þriggja kolefna pýrúvat sem myndast við sykurrof berst úr umfrymi inn í hvatberagrunnfrymið. Pýrúvatdehýdrógenasafléttan umbreytir því þar í tveggja kolefna asetýlkóensím A (asetýl-CoA) með oxandi afkarboxýleringu. Við hvarfið losnar koltvísýringur og NAD+ afoxast í NADH. Asetýl-CoA fer síðan inn í sítrónusýruhringinn: tveggja kolefna asetýlhópurinn tengist fjögurra kolefna oxalóasetati og myndar sex kolefna sítrat, eða sítrónusýru, en kóensím A losnar. Asetýl-CoA er þannig tengiliður milli oxunar pýrúvats og hringsins.
Sex kolefna sítratinu er umbreytt í röð hvarfa, fyrst í fimm kolefna milliefni og síðan fjögurra kolefna milliefni, þar til oxalóasetat endurmyndast. Við einn hring fyrir hvern asetýlhóp myndast þrjár NADH-sameindir, ein FADH2-sameind og ein GTP-sameind sem jafngildir einni ATP-sameind. NADH og FADH2 leggja rafeindir til oxunarfosfórunar við innri hvatberahimnuna. Milliefni sítrónusýruhringsins tengja hringinn einnig við nýmyndun og niðurbrot amínósýra, fitusýra og annarra sameinda; hringurinn er því bæði niðurbrots- og uppbyggingarleið.
Sítratsyntasi tengir asetýl-CoA við oxalóasetat og myndar sex kolefna sítrat; CoA losnar og getur tekið þátt í nýrri oxun pýrúvats. Akónítasi umbreytir sítrati í ísósítrat. Í tveimur oxandi afkarboxýleringum umbreytir ísósítratdehýdrógenasi ísósítrati í fimm kolefna alfa-ketóglútarat og alfa-ketóglútaratdehýdrógenasafléttan umbreytir því síðan í fjögurra kolefna súksínýl-CoA. Við þessi tvö hvarfþrep losna tvær CO2-sameindir og myndast tvær NADH-sameindir. Súksínýl-CoA-syntetasi umbreytir súksínýl-CoA í súksínat og myndar GTP með hvarfefnisstigsfosfórun; GTP getur síðan flutt fosfathóp á ADP og myndað ATP. Súksínatdehýdrógenasi oxar súksínat í fúmarat og myndar FADH2. Fúmarasi umbreytir fúmarati í malat og malatdehýdrógenasi oxar malat í oxalóasetat um leið og NAD+ afoxast í NADH. Oxalóasetatið getur þá tekið við næsta asetýl-CoA (sjá mynd 24.7). Fyrir hvern hring myndast þrjár NADH, ein GTP eða ATP og ein FADH2 ; tvær CO2 losna. Þegar ferlið er skoðað yfir marga hringi losna kolefnisatóm sem komu inn með pýrúvati samanlagt sem CO2 við oxun pýrúvats og í sítrónusýruhringnum.
Oxunarfosfórun og rafeindaflutningskeðjan
Rafeindaflutningskeðjan (ETC) tekur við rafeindum frá NADH og FADH2. Rafeindirnar flytjast um fjórar prótínfléttur (flóka I–IV) í innri hvatberahimnunni og tvo hreyfanlega bera, ubíkínón eða kóensím Q og cýtókróm c. Flóki II tekur við rafeindum frá FADH2 án þess að dæla prótónum, en flókar I, III og IV tengja rafeindaflutning við dælingu H+ úr hvatberagrunnfrymi í millihimnubil (mynd 24.8). Rafeindaflutningur frá NADH að lokaþeganum O2 tengist flutningi H+ yfir innri himnuna og myndar rafefnafræðilegan prótónustigul sem knýr oxunarfosfórun. Sameindasúrefni, O2, er lokaþegi rafeinda við flóka IV. Þar tengjast rafeindir sameindasúrefni, O2, og H+ og mynda vatn. Ef súrefni vantar stöðvast rafeindaflæði um keðjuna og enduroxun NADH og FADH2; súrefnið myndar þó ekki ATP með beinu hvarfi við ADP.
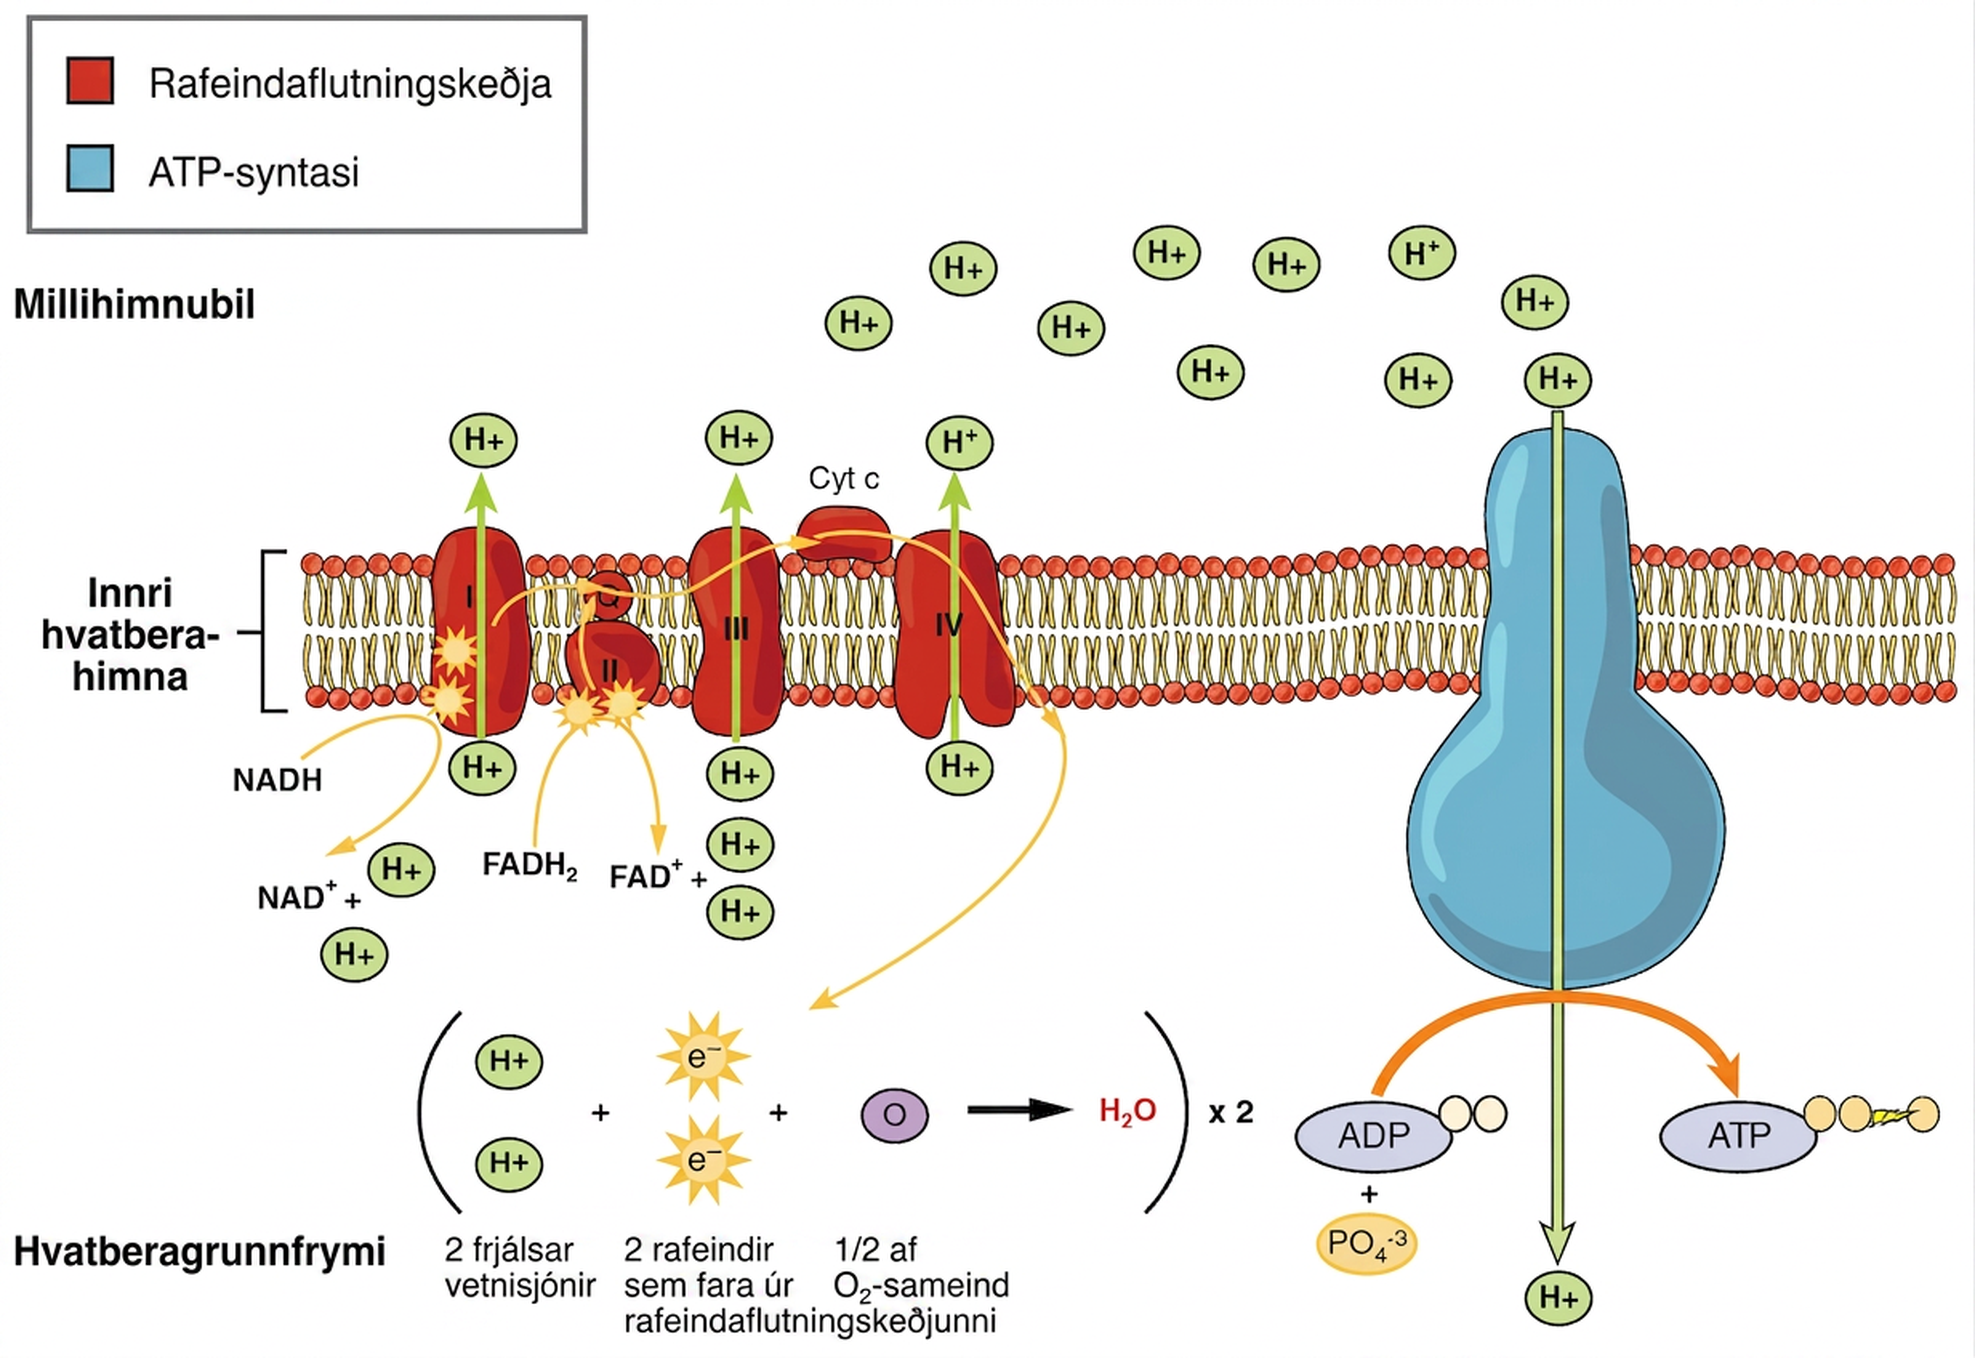
Rafeindir frá NADH og FADH2 flytjast milli bera keðjunnar. Hver beri afoxast þegar hann tekur við rafeindum og oxast þegar hann afhendir þær næsta bera. Nettóbreyting frjálsrar orku við flutninginn knýr prótónudælingu í flókum I, III og IV; ekki hvert einstakt skref dælir H+. Uppsöfnun prótóna í millihimnubilinu myndar rafefnafræðilegan stigul og prótónuhreyfikraft gagnvart hvatberagrunnfryminu.
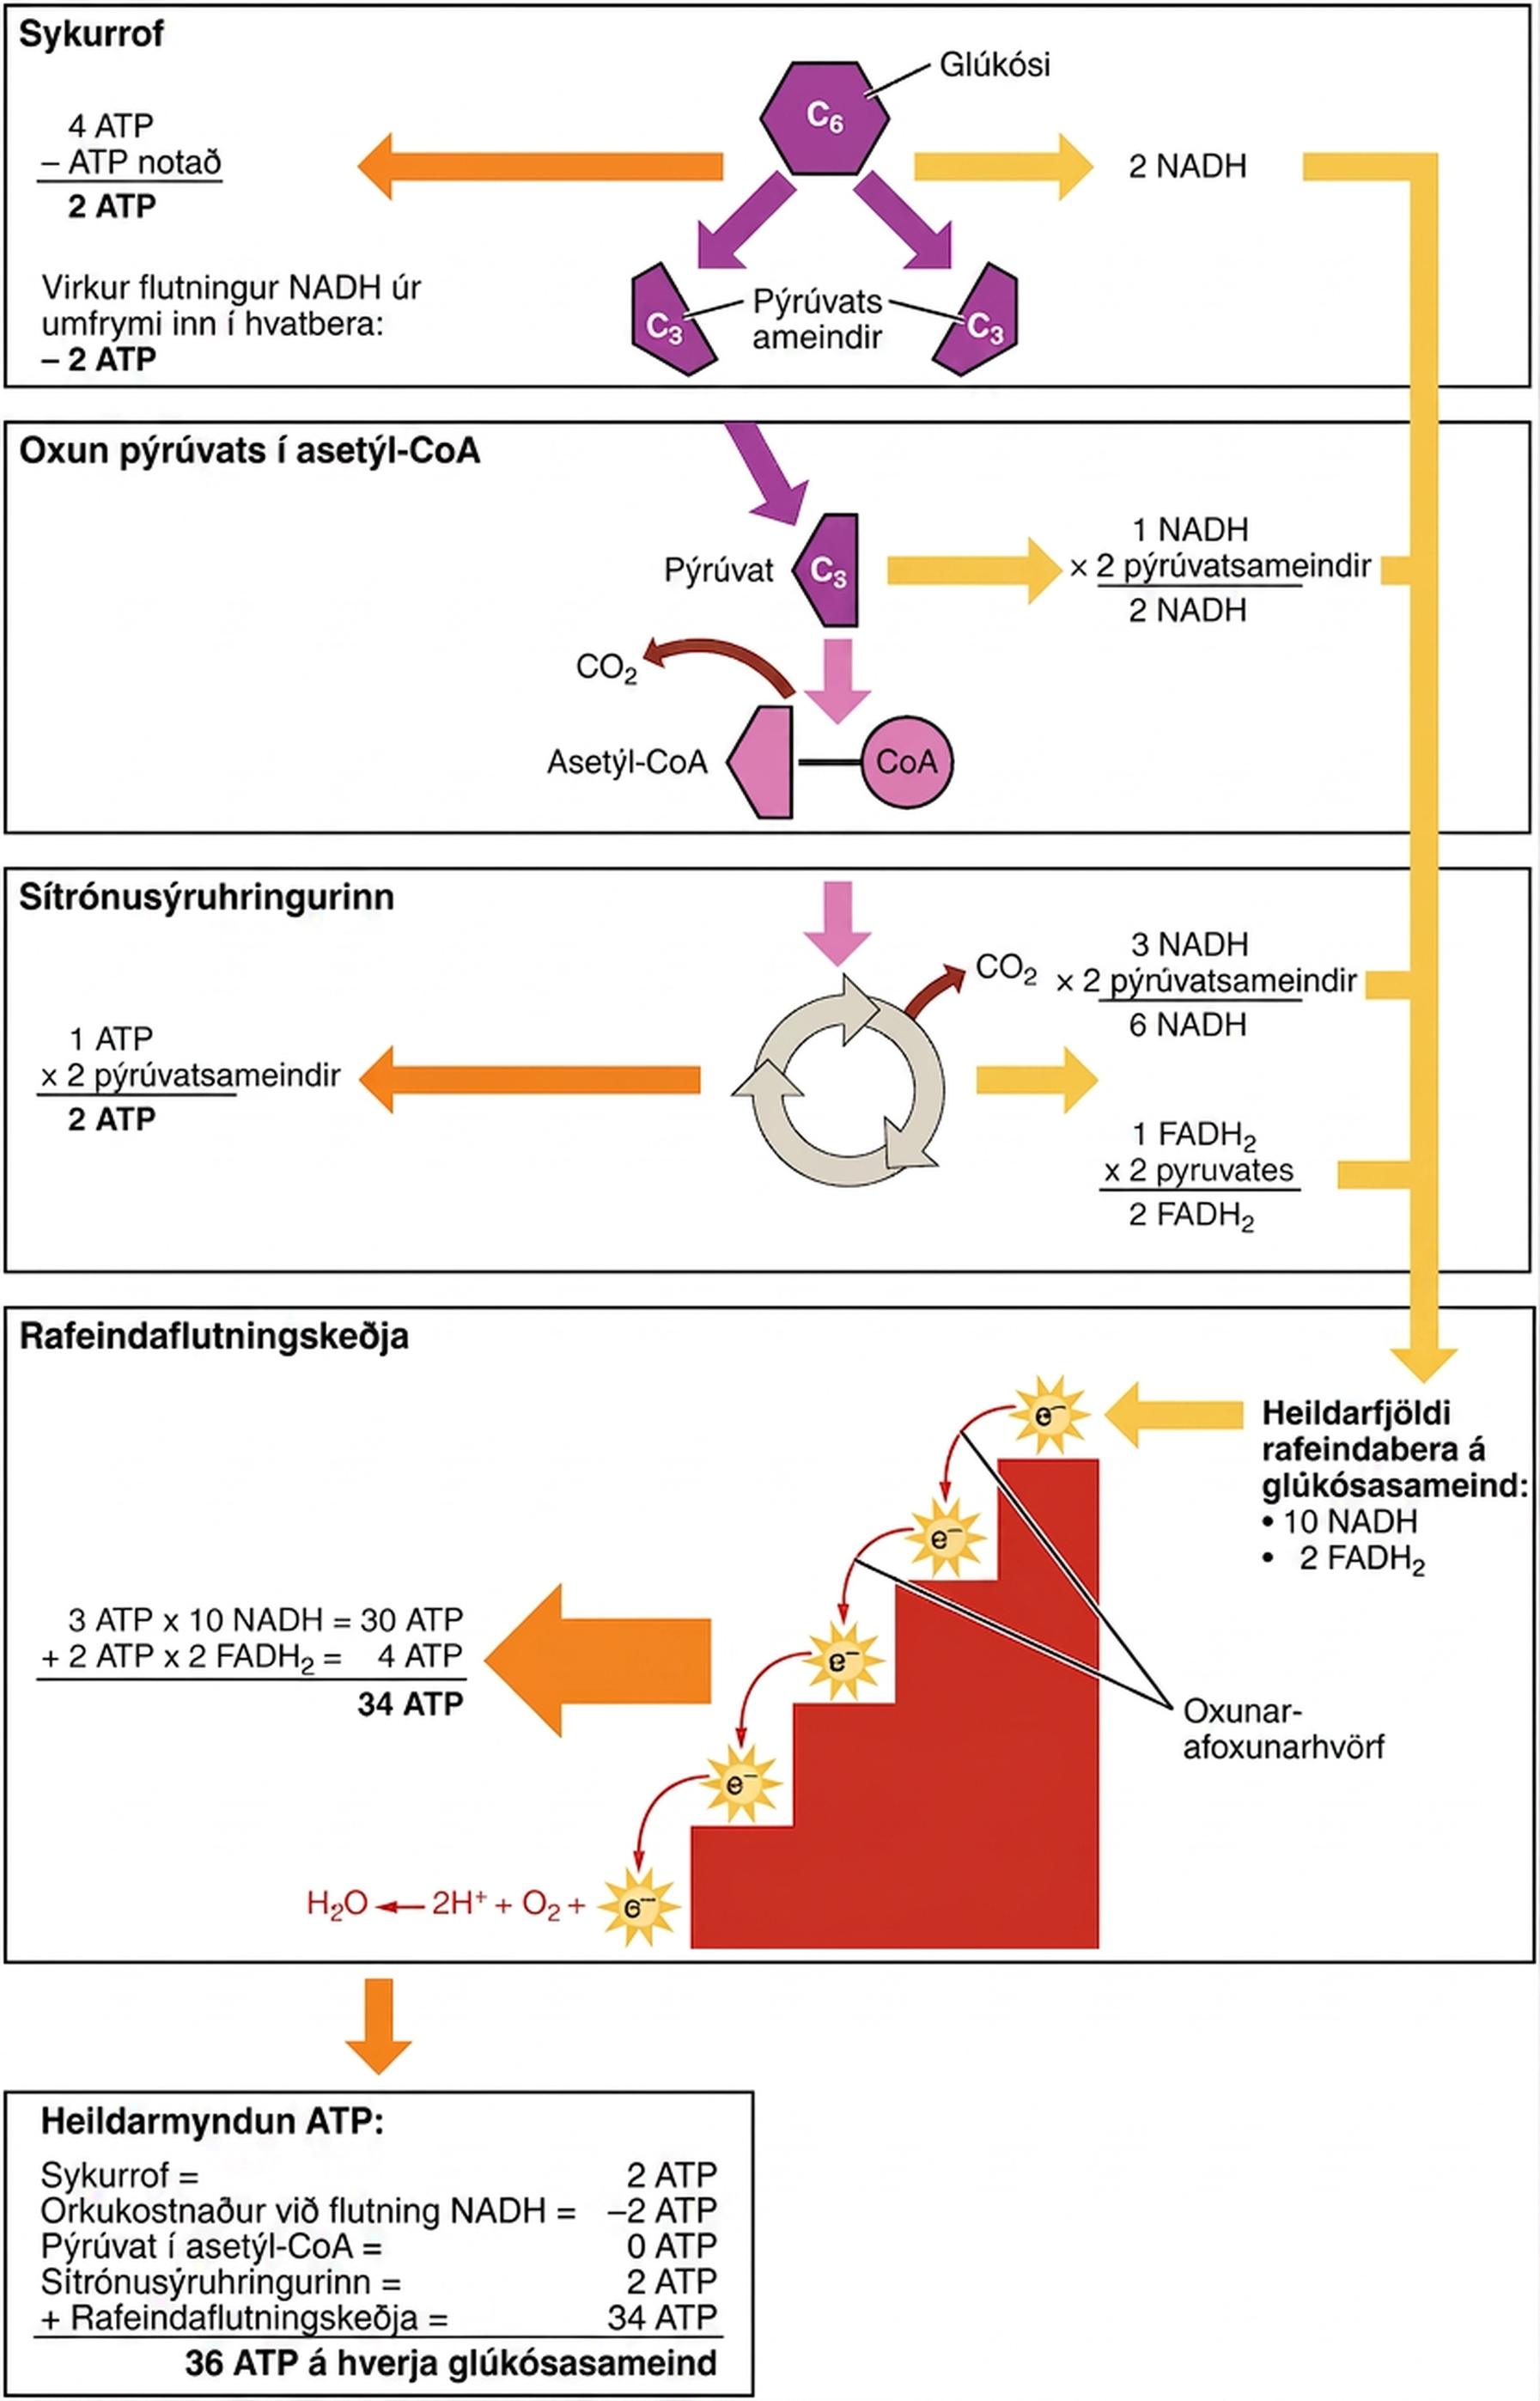
ATP-syntasi er prótínflétta í innri hvatberahimnunni. H+-jónir flæða niður rafefnafræðilegan stigul og aftur inn í hvatberagrunnfrymið. Þegar H+-jónirnar fara um fléttuna snýst hluti hennar og hreyfingin tengist myndun ATP úr ADP og Pi. ATP-syntasi nýtir þannig prótónuhreyfikraftinn; prótónurnar verða ekki hluti af ATP-sameindinni. Þegar áætlaður ATP-afrakstur loftháðrar frumuöndunar er reiknaður þarf að hafa eftirfarandi í huga:
Heildarafrakstur loftháðrar oxunar einnar glúkósasameindar í heilkjörnungafrumu er því yfirleitt áætlaður um 30–32 ATP-sameindir, eftir meðal annars því hvaða ferja flytur afoxunarígildi umfrymis-NADH inn í hvatbera (mynd 24.9).
Glúkósanýmyndun
Glúkósanýmyndun er myndun glúkósa úr forefnum sem eru ekki kolvetni, einkum laktati, glýseróli og sykurmyndandi amínósýrum; pýrúvat er mikilvægt milliefni. Ferlið fer aðallega fram í lifur en einnig í nýrnaberki, einkum við lengri föstu. Það viðheldur blóðsykri þegar frásogaður glúkósi og glýkógenbirgðir nægja ekki. Rauðkorn eru háð glúkósa vegna þess að þau hafa enga hvatbera. Heilinn notar venjulega mikið af glúkósa en getur við langvarandi föstu aukið notkun ketónefna og er þá ekki eingöngu háður glúkósa. Hormón og aðgengi hvarfefna stýra glúkósanýmyndun þannig að blóðsykur haldist innan lífeðlisfræðilegra marka.
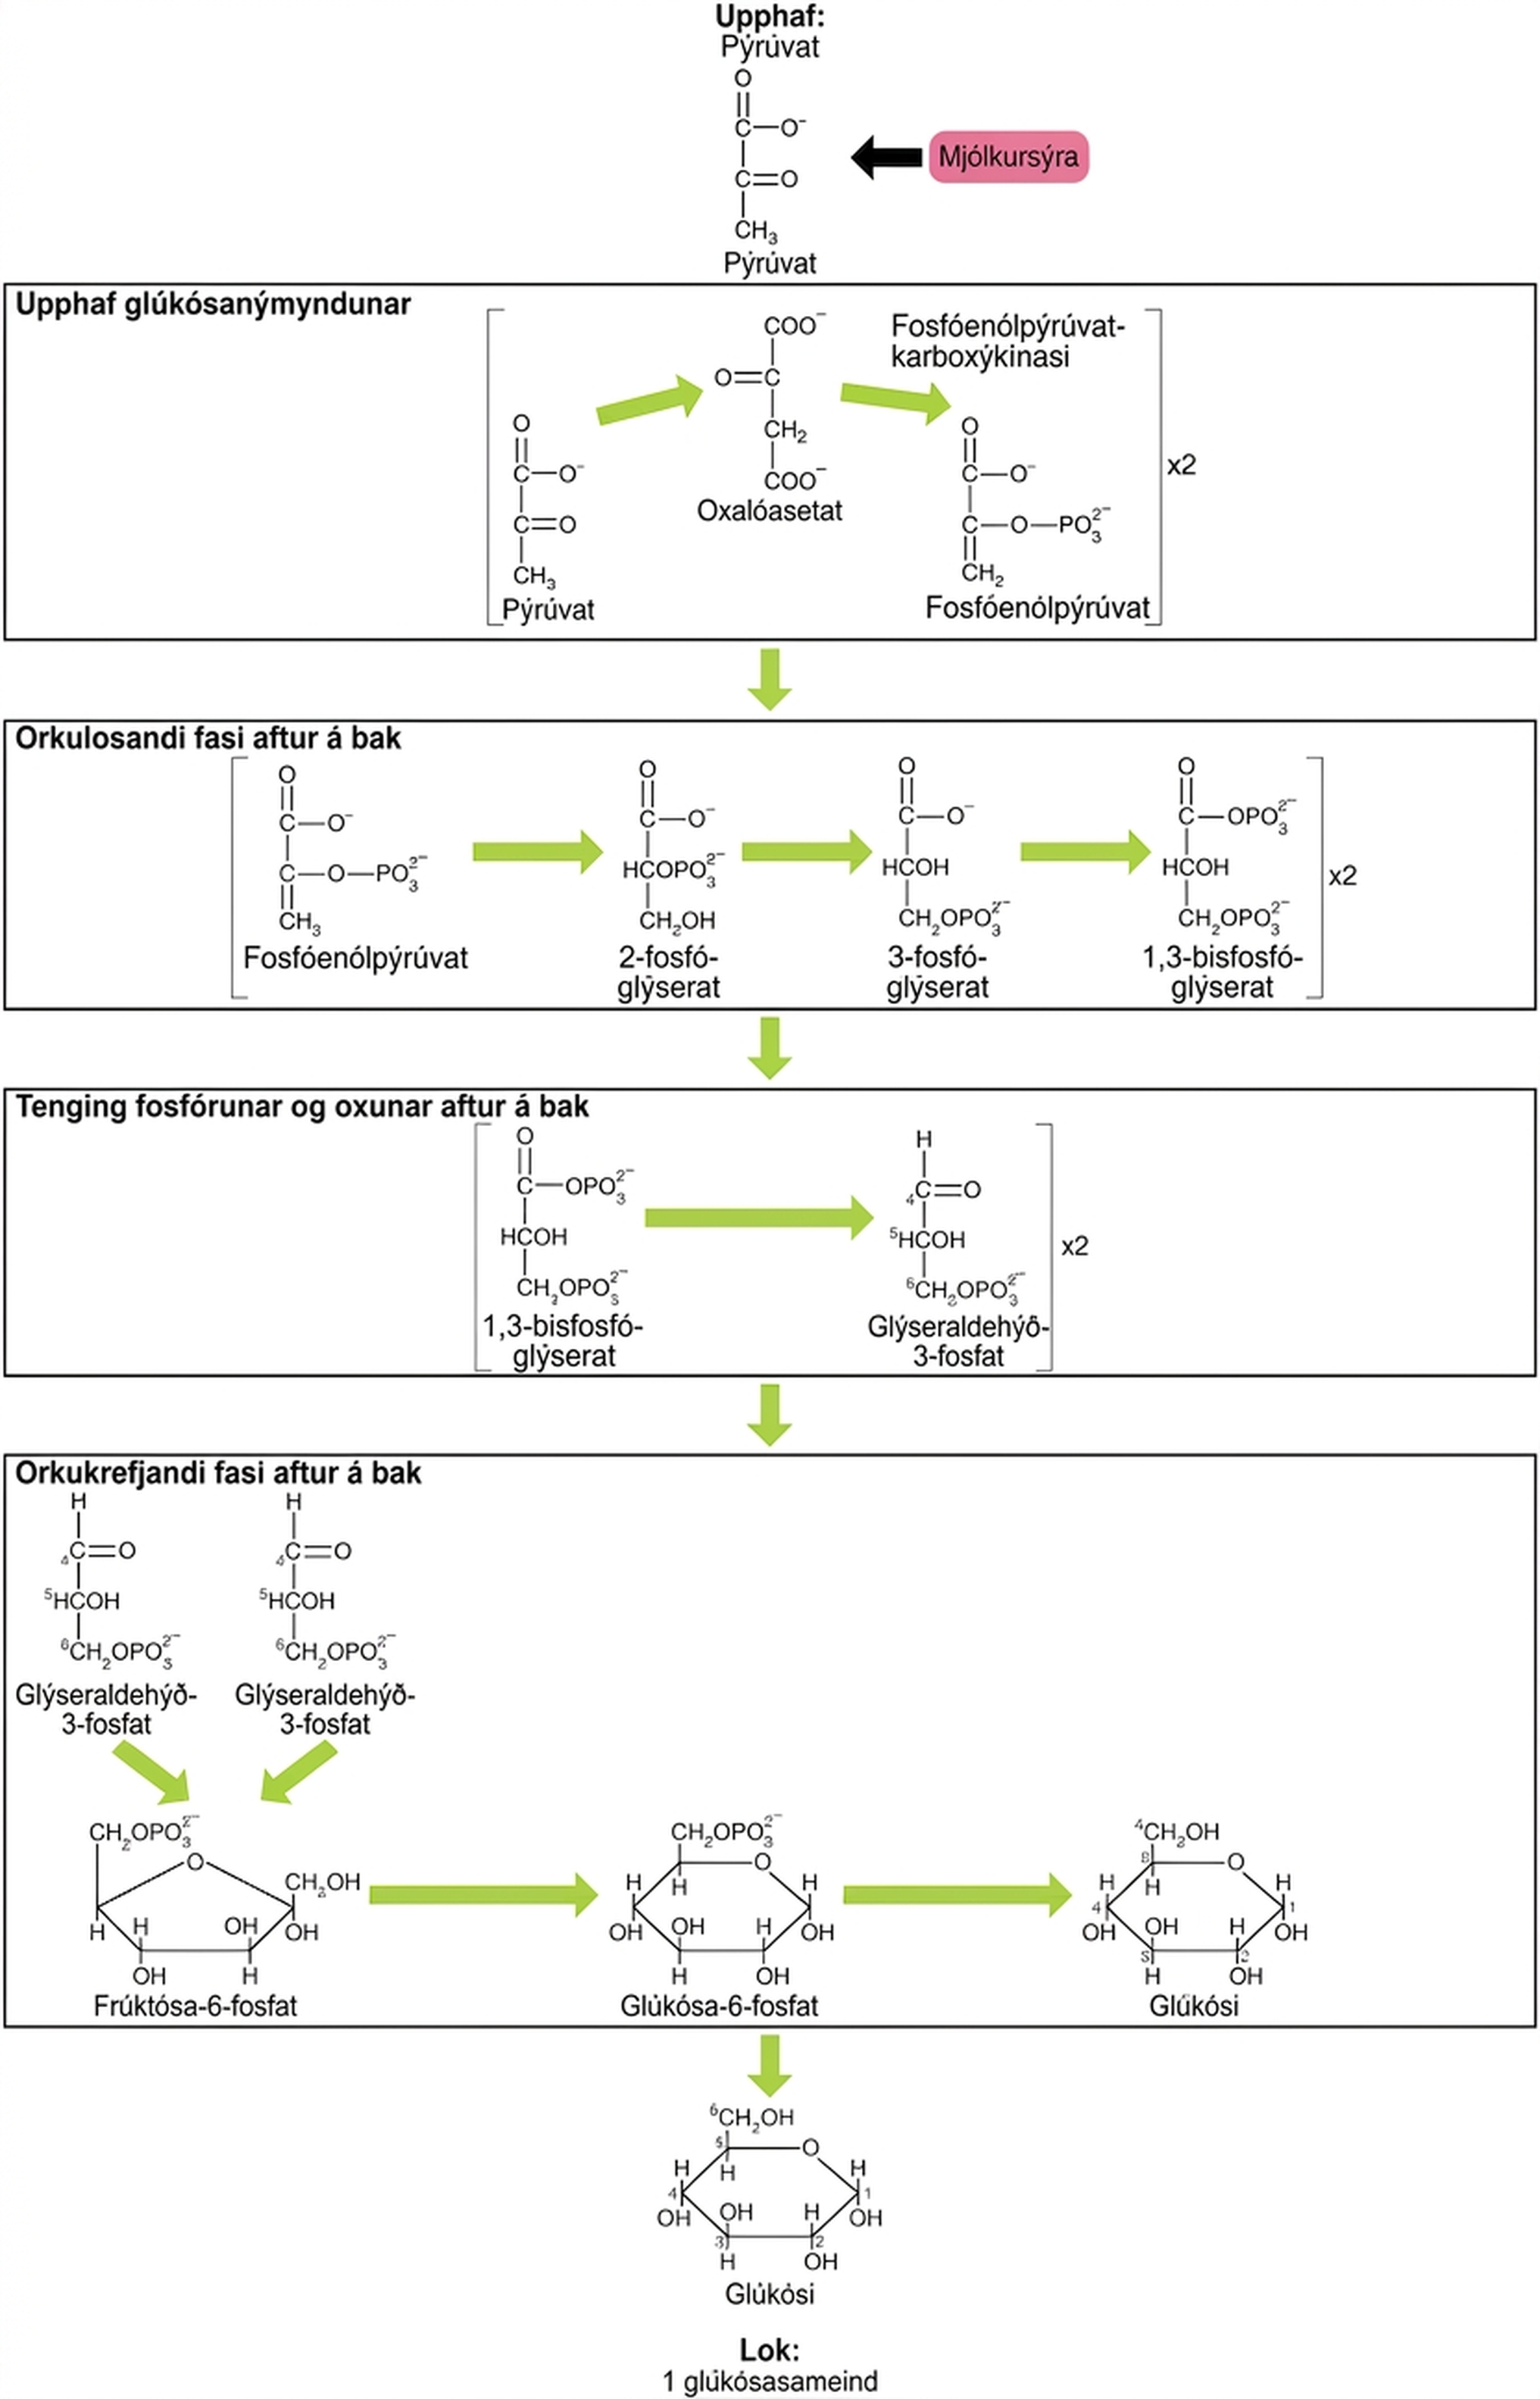
Glúkósanýmyndun er ekki einfaldlega sykurrof aftur á bak, því þrjú mjög útvermin og stýrð skref sykurrofs eru sniðgengin með öðrum ensímum (mynd 24.10). Pýrúvatkarboxýlasi umbreytir pýrúvati fyrst í oxalóasetat og fosfóenólpýrúvatkarboxýkínasi (PEPCK) umbreytir oxalóasetati síðan í fosfóenólpýrúvat (PEP). PEP umbreytist um afturkræf skref fyrst í 2-fosfóglýserat og síðan 3-fosfóglýserat. 3-fosfóglýseratið umbreytist svo í 1,3-bisfosfóglýserat og glýseraldehýð-3-fosfat. Önnur af tveimur glýseraldehýð-3-fosfatsameindum er ísómeruð í díhýdroxýasetónfosfat og aldólasi tengir þríósafosfötin í frúktósa-1,6-bisfosfat. Frúktósa-1,6-bisfosfatasi myndar frúktósa-6-fosfat og eftir ísómeringu myndast glúkósa-6-fosfat. Að lokum myndar glúkósa-6-fosfatasi frjálsan glúkósa. Þannig koma glúkósa-6-fosfatasi og frúktósa-1,6-bisfosfatasi í stað bakhvarfa hexókínasa og fosfófrúktókínasa-1, ásamt sniðgönguleið með tveimur ensímum fram hjá pýrúvatkínasahvarfinu. Myndun einnar glúkósasameindar úr tveimur pýrúvötum kostar fjórar ATP-, tvær GTP- og tvær NADH-sameindir og er stýrt gagnstætt sykurrofi.
Við fiturof losnar glýseról úr þríasýlglýserólum. Glýserólkínasi fosfórar glýseról fyrst í glýseról-3-fosfat og glýseról-3-fosfatdehýdrógenasi oxar það síðan í díhýdroxýasetónfosfat (DHAP). DHAP getur farið inn í sykurrof eða nýst í lifur og nýrnaberki sem hvarfefni glúkósanýmyndunar.